磷酸化 tau 蛋白的积累和成年海马神经发生(AHN)的损伤均是阿尔茨海默病(AD)认知功能下降的重要因素,但 tau 蛋白是否以及如何调控 AD 中的 AHN 仍知之甚少。本研究发现,AD 患者和小鼠齿状回(DG)的 GABA 能中间神经元中磷酸化 tau 蛋白显著积累。在小鼠 DG 中间神经元中特异性过表达人 tau 蛋白(hTau)可诱导 AHN 缺陷,但会增加神经干细胞来源的星形胶质增生,并伴有 GABA 下调和邻近兴奋性神经元的过度激活。化学遗传学抑制兴奋性神经元或药物增强 GABA 能神经元的活性可挽救 tau 蛋白诱导的 AHN 缺陷,并改善情境认知功能。这些研究结果表明,GABA 能中间神经元中 tau 蛋白的细胞内积累会抑制 GABA 能传递并解除神经发生微环境中的神经回路的抑制,从而损害 AHN,这表明 GABA 能增强剂具有促进 AD 神经发生或细胞治疗的潜力。
一、引言阿尔茨海默病(AD)是老年人中最常见的痴呆形式。迄今为止,靶向β-淀粉样蛋白(Aβ)和tau蛋白的治疗方法在多次临床试验中已被证明在阻止AD进展方面效果有限。通过促进内源性神经发生(特别是在海马中)或移植外源性干细胞或胚胎神经元来修复或重建AD大脑中退化的神经回路,为预防AD认知衰退带来了新的希望。然而,AD大脑中的病理因素如何可能失调神经发生的命运尚未完全阐明。
成年海马神经发生(AHN)源于神经干细胞(NSCs)的增殖,其中大多数在正常条件下由于来自中间神经元的广泛GABA能输入以及通过谷氨酸能神经元介导的直接细胞-细胞粘附的中间神经元信号而保持静止状态。在AD患者和动物中观察到AHN显著下降,这种下降甚至在AD发病之前就已发生。了解AD病理因素如何决定AHN的命运对于有效引入来自内源性或移植NSCs的神经发生至关重要。
Tau病理在AD进展中至关重要。近期研究还揭示了tau蛋白在经验依赖性AHN调节中的关键作用。尽管发现在表达全长而非抗聚集型人tau蛋白的小鼠中AHN受损,但tau聚集如何失调AD中AHN的神经生物学机制尚不清楚。我们此前报道,小鼠海马中tau积累损害了局部GABA能传递,可能是通过失调中间神经元中的GABA代谢。鉴于GABA能节律在维持NSC静止状态和塑造AHN中的重要作用,我们假设tau积累,特别是在GABA能中间神经元中的积累,通过失调GABA能传递和破坏海马神经发生微环境中的神经网络动态,导致AD大脑中的AHN缺陷。
二、结果2.1 AD患者和小鼠海马DG区GABA能中间神经元中磷酸化tau蛋白的显著积累
为研究tau聚集如何失调AD中的AHN,我们检查了AD患者和3xTg AD小鼠海马神经发生微环境(即齿状回(DG)的颗粒下区(SGZ)和门区)中磷酸化tau蛋白(pTau)的分布。在AD患者的SGZ和门区观察到显著的pTau积累,这些pTau阳性细胞中的大多数通过与谷氨酸脱羧酶67(GAD67)、小白蛋白(PV)和生长抑素(SST)共标记被鉴定为GABA能中间神经元(图1A-C)。
与AD患者DG中pTau分布一致,在6月龄3xTg AD小鼠的SGZ和门区也观察到显著的pTau积累,大多数pTau阳性细胞也与GAD67、PV或SST共标记,但不与CaMKII(投射神经元标志物,标记海马中的谷氨酸能神经元)共标记。SGZ和门区约73.04%的pTau+(磷酸化Thr181、Thr205或Ser396)细胞被鉴定为GABA能中间神经元。此外,发现DG中约71.07%的PV阳性和82.12%的SST阳性中间神经元(GABA能中间神经元的两个主要亚群)存在pTau积累(图1D-G)。
这些数据共同揭示了AD患者和小鼠海马DG区GABA能中间神经元中占主导地位的pTau积累。(图1)

图1. AD患者和3xTg AD小鼠海马SGZ和门区GABA能中间神经元中磷酸化tau蛋白的积累。 图1展示了AD患者和小鼠海马神经发生微环境中磷酸化tau蛋白在GABA能中间神经元中的显著积累情况,包括与GAD67、PV和SST等标志物的共定位分析。
2.2 在DG GABA能中间神经元中过表达hTau诱导AHN缺陷
为探索DG GABA能中间神经元中人tau蛋白(hTau)积累如何影响AHN,我们将AAV-EF1α-DIO-hTau-mCherry(hTau组)或AAV-EF1α-DIO-mCherry(mCherry组)分别注入Dlx5/6-Cre-IRES-EGFP(简称Dlx5/6-CIE)、PV-Cre和SST-Cre小鼠的DG亚区。Dlx5/6-CIE是一种Cre重组酶特异性表达于泛GABA能中间神经元的转基因品系,且Dlx5/6启动子驱动的EGFP表达在成年小鼠中急剧下降至几乎检测不到的水平。我们此前已证明AAV介导的hTau过表达足以模拟AD样pTau积累。
深圳市富临神通科技有限公司(原“东莞市富临塑胶原料有限公司”)是 Intan Technologies中国代理商,我们为客户提供Headstages、芯片、记录系统、刺激/记录系统、SPI线等电生理产品。
腺相关病毒(AAV)注射一个月后,在处死小鼠前连续5天腹腔注射溴脱氧尿苷(BrdU,50 mg/kg)以评估细胞增殖。使用双皮质素(DCX)和NeuroD1作为生物标志物来测量未成熟颗粒细胞(GCs)的数量。携带Gfp基因的逆转录病毒(ROV-GFP)与AAVs共同注射,以检查在hTau积累到高水平之前产生的新生GCs的树突成熟情况(图2A-D)。
在泛GABA能中间神经元(Dlx5/6阳性)中选择性过表达hTau减少了BrdU-、DCX-和NeuroD1标记细胞的数量,同时减少了树突长度、复杂性和棘密度,但ROV-GFP标记的新生神经元总数未改变,与mCherry组相比。这些数据表明,在GABA能中间神经元中特异性过表达hTau在小鼠中诱导了多种AHN缺陷。
我们进一步验证了PV和SST中间神经元中hTau过表达各自如何独立导致观察到的AHN损伤。在PV和SST中间神经元中选择性hTau过表达导致可比较的AHN缺陷:两者均减少了BrdU和DCX标记细胞数量,降低了树突长度、复杂性和棘密度,而不改变ROV-GFP标记的新生神经元数量(图2E-J)。
这些数据表明,PV和SST中间神经元在调节AHN方面可能同等重要。(图2)
图2. 中间神经元特异性过表达hTau诱导AHN缺陷。
图2展示了在泛GABA能中间神经元(Dlx5/6阳性)、PV阳性中间神经元和SST阳性中间神经元中过表达人tau蛋白后,成年海马神经发生的多项指标(包括细胞增殖、未成熟神经元数量、树突形态和棘密度)均出现显著下降。
2.3 在DG兴奋性或未成熟GCs中过表达hTau对AHN影响有限
我们还检查了DG兴奋性神经元(包括成熟GCs和苔藓细胞)或未成熟GCs中hTau积累是否及如何影响AHN,因为在当前和以前的研究中,在这些细胞中也检测到pTau积累(特别是Thr205磷酸化的pTau)。
通过AAV-CaMKIIα-hTau在DG兴奋性神经元中特异性过表达hTau减少了新生神经元的树突棘密度,但对AHN过程中的细胞增殖和未成熟神经元的早期存活/分化仅表现出有限的影响(图S2A-H)。
出乎意料的是,通过联合注射ROV-EF1α-Cre与AAV-EF1α-DIO-hTau在未成熟GCs中特异性过表达hTau促进了新生神经元的存活,但对AHN过程中的细胞增殖、分化和树突成熟未诱导显著变化(图S2I-P)。
因此,我们推测GABA能DG神经元亚型中的tau积累,而非其他任何亚型,是导致当前和以前研究中观察到的AD中显著AHN损伤的主要因素。随后我们专注于研究中间神经元hTau积累如何诱导AHN缺陷。
2.4 中间神经元特异性hTau过表达增加NSC来源的星形胶质细胞增生
我们检查了GABA能中间神经元hTau过表达诱导的观察到的AHN缺陷是否源于NSC异常,使用通过Dlx5/6-CIE与Nestin-GFP转基因小鼠杂交获得的Dlx5/6-CIE:Nes-GFP小鼠。通常,在20-40倍物镜下,静止NSC在形态上可特征性地表现为从胞体发出的一或两个主干的非常远端部分具有烟雾状和密集分布的分支。中间神经元特异性hTau过表达未统计学改变Nes-GFP阳性细胞的总数,但显著增加了形态学非典型细胞的比例,其特征为来自胞体的远端分支减少但近端分支增加(图3A-E)。
我们接下来通过荧光激活细胞分选(FACS)和实时定量PCR测量了Nes-GFP阳性细胞中几个在调节NSC静止状态或在AHN过程中决定细胞命运中起关键作用的关键基因的mRNA。中间神经元特异性hTau过表达抑制了ID4(细胞静止状态标志物)的基因表达,但上调了MCM2(细胞激活标志物)的表达,表明NSC正从静止状态退出。此外,hTau过表达还下调了COUP-TF1和Neurod1的mRNA,但上调了GFP阳性细胞中的Aldh1l1、Gfap和S100β,这共同表明NSC来源的神经发生向星形胶质细胞增生的转变。
为进一步追踪NSC来源子细胞的最终命运,在AAV-DIO-hTau-mCherry注射后3周(此时经验证hTau已确保积累到高水平),将ROV-GFP立体定位注入Dlx5/6-CIE小鼠的DG以标记新生细胞。在ROV-GFP再灌注3周后,大多数ROV-GFP标记细胞分化为星形胶质细胞样细胞而非神经元,并表达GFAP(一种主要在星形胶质细胞中表达的蛋白质)。有趣的是,大多数GFP/GFAP双标记细胞倾向于迁移至DG的分子层(ML)。一致地,在中间神经元hTau过表达小鼠的DG ML中观察到GFAP免疫反应性细胞数量增加(图3F-K)。
这些数据证明,在GABA能中间神经元中过表达hTau增加了NSC来源的星形胶质细胞增生并损害了神经发生。(图3)
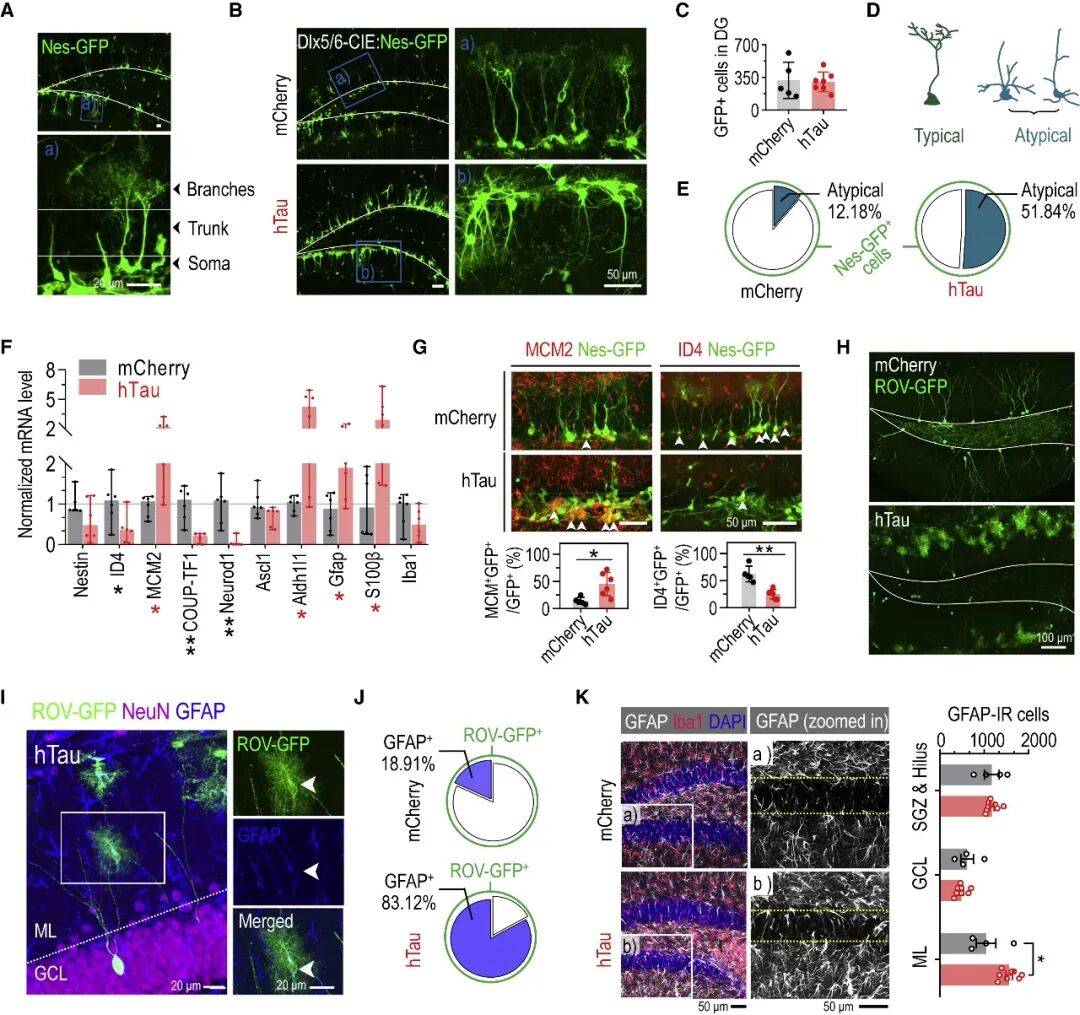
图3. 中间神经元hTau过表达增加NSC来源的星形胶质细胞增生。 图3展示了hTau过表达导致神经干细胞形态改变、静止状态退出相关基因表达变化,以及NSC来源细胞向星形胶质细胞命运转变并迁移至分子层的详细过程。
2.5 在DG GABA能中间神经元中过表达hTau诱导局部神经网络过度激活
为进一步探索中间神经元hTau过表达诱导的AHN缺陷和NSC来源星形胶质细胞增生背后的神经生物学机制,我们筛选了小鼠DG中的蛋白质表达和磷酸化。在蛋白质组学和磷酸化蛋白质组学分析中,总共有142/4,536个蛋白质和576/6,414个磷酸肽在371/2,013个蛋白质中被定量确定为统计学上调或下调(以1.3作为倍数变化的阈值),其中包括29个蛋白质和139个磷酸肽(在60个蛋白质中)参与神经发生或星形胶质细胞增生过程。重要的是,在改变的蛋白质或磷酸肽中发现最显著的富集是参与突触传递、组装和可塑性的生物学过程,表明突触信号失调对中间神经元hTau过表达中观察到的AHN缺陷或NSC来源星形胶质细胞增生有重要贡献。事实上,GABA能和谷氨酸能节律的破坏都足以导致NSC从静止状态快速退出并最终产生星形胶质细胞增生而非神经发生。在此,我们观察到中间神经元hTau过表达显著改变了参与一般性、谷氨酸能或GABA能突触传递的各种蛋白质的表达或磷酸化。
为直接检查中间神经元中hTau过表达如何失调局部神经网络动态,我们通过在体电生理记录记录了小鼠SGZ中的神经放电率和振荡。GABA能中间神经元中hTau过表达增加了总体神经放电率,并增加了局部场电位(LFP)的功率谱密度(PSD),表现为delta振荡(1-4 Hz)的主导性增加和慢gamma振荡(30-45 Hz)的轻微减少。此外,在电生理记录期间未检测到小鼠平均速度或总行进距离的显著变化。
我们接下来通过将AAV-CaMKIIα-GCaMP6f注入小鼠DG并测量钙反应,具体检查了中间神经元hTau过表达如何影响邻近兴奋性神经元的活动。与感染mCherry或GFP的小鼠相比,中间神经元hTau过表达显著增强了DG中的钙反应(以5% ΔF/F为阈值),表明局部兴奋性神经元的过度激活。与泛GABA能hTau过表达对局部神经元兴奋性的影响一致,PV阳性中间神经元亚群中选择性hTau过表达也导致邻近兴奋性神经元的过度激活,而SST阳性中间神经元中的过表达倾向于抑制局部兴奋性神经元的活动。这种差异可能涉及DG中PV、SST和兴奋性神经元之间的三级突触连接。(图4)
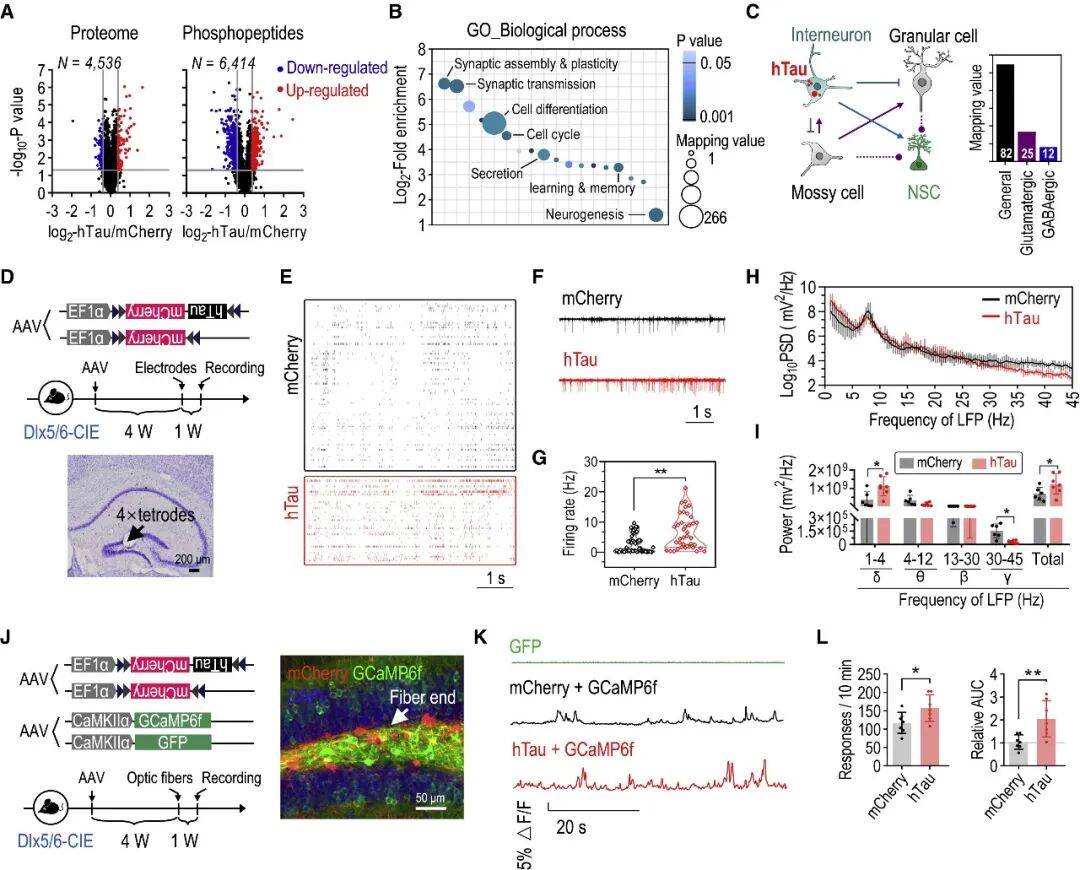
图4. GABA能中间神经元hTau过表达破坏突触传递并诱导神经网络过度激活。 图4展示了蛋白质组学和磷酸化蛋白质组学分析结果、在体电生理记录显示的神经放电率和振荡变化,以及钙成像显示的兴奋性神经元过度激活情况。
2.6 局部神经网络过度激活导致中间神经元hTau诱导的AHN缺陷
为验证泛中间神经元hTau过表达诱导的神经网络过度激活对观察到的AHN缺陷和NSC来源星形胶质细胞增生的贡献,我们使用设计受体 exclusively activated by designer drugs(DREADDs)慢性抑制DG兴奋性神经元。将AAV-EF1α-DIO-hTau-mCherry和AAV-CaMKIIα-hM4Di-FLAG共同注入Dlx5/6-CIE:Nes-GFP或Dlx5/6-CIE小鼠的DG。通过饮水给予氯氮平N-氧化物(CNO,1.25 μg/mL)连续6周
兴奋性神经元的化学遗传学抑制显著改善了中间神经元hTau过表达诱导的NSC异常和AHN缺陷,表现为形态学静止NSC比例增加、BrdU和DCX标记细胞数量增加,以及新生神经元树突复杂性和棘密度增加,与给予CNO但共表达hTau+FLAG的小鼠相比。应注意,兴奋性神经元的化学遗传学抑制未统计学改变神经元样ROV-GFP标记的新生GCs比例和ML中GFAP免疫反应性星形胶质细胞数量,可能是由于hTau过表达导致局部GABA能中间神经元对NSCs、中间祖细胞(IPCs)和未成熟GCs的直接GABA能输入仍然不足。
这些数据共同证实了中间神经元hTau积累诱导的神经网络过度激活对AHN缺陷的主要贡献,这可以通过局部兴奋性神经元的化学遗传学抑制部分挽救。(图5)
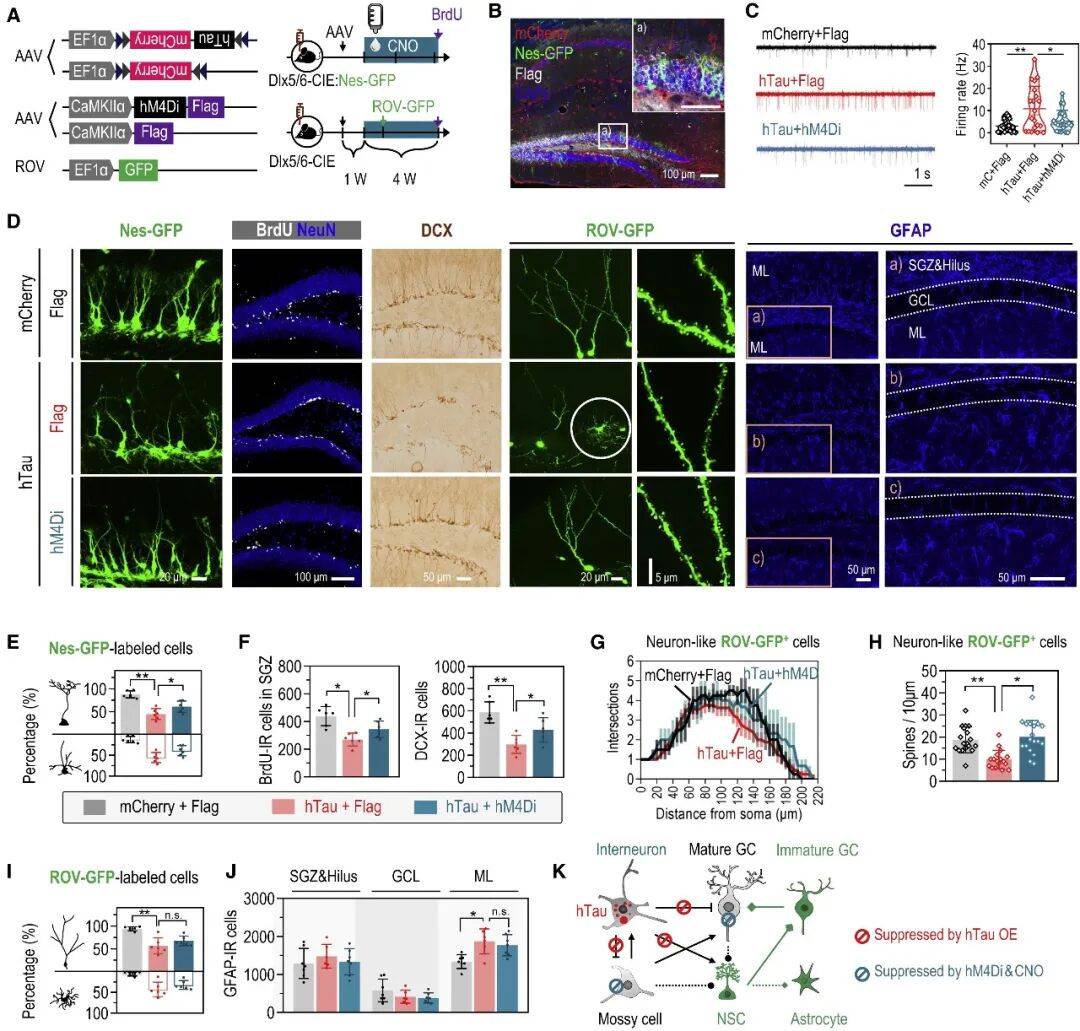
图5. 神经网络过度激活的化学遗传学抑制改善中间神经元hTau过表达诱导的AHN缺陷。 图5展示了DREADDs介导的兴奋性神经元抑制实验设计、对NSC静止状态恢复、神经发生指标改善以及树突形态恢复的效果。
2.7 中间神经元hTau积累损害GABA能传递
我们此前报道tau积累失调海马中的GABA代谢。为测试观察到的hTau诱导的神经网络过度激活是否是GABA能传递任何损害的结果,此处我们使用基因工程GABA传感器iGABASnFR直接测量在体GABA能反应。与仅表达mCherry的小鼠相比,中间神经元hTau过表达显著减弱了DG中的GABA能反应(以5% ΔF/F为阈值)。一致地,hTau还下调了DG中的局部GABA水平,特别是GABA能中间神经元内的GABA水平。
为进一步探索hTau过表达损害GABA能传递的分子机制,我们检查了参与GABA代谢的几个关键蛋白质的表达,包括GABA合成(GAD65和GAD67)、转运(VGAT)、释放(突触结合蛋白1、突触蛋白1和VAMP2)、再摄取(GAT1)和降解(ABAT和SSADH)。除GAT1(一种锚定在质膜上从突触间隙再摄取GABA的转运蛋白)减少外,未发现任何蛋白质有统计学变化。然而,GAT1的减少似乎不太可能是GABA反应减弱的原因,而可能只是GABA减少的代偿性结果。
重要的是,我们发现中间神经元特异性hTau过表达显著下调GAD67的磷酸化,而非GAD65的磷酸化,这两种是负责GABA产生的主要酶,尽管未检测到总GAD67和GAD65的统计学变化。磷酸化蛋白质组学分析中也获得了一致的结果。因此,磷酸化GAD67(pGAD67)的减少可能失调GABA合成并最终导致GABA减少。
此外,我们还观察到GABA能中间神经元中hTau(P301S)(一种比野生型tau更容易错误折叠的突变型tau)的过表达仅诱导与野生型hTau可比较的pGAD67和GAT1减少,表明hTau的错误折叠可能不会加剧其对GABA代谢的毒性作用。
此外,GABA能中间神经元中hTau的胞内过表达还下调了GABAARs的δ亚基表达,而非α、β或γ2亚基,以及gephyrin(一种调节GABAARs突触后聚集的蛋白质)的表达。胞内hTau似乎不太可能直接与突触后GABAARs相互作用。相反,GABAAR δ的减少可能主要归因于未成熟GCs的减少,这是富含δ-containing GABAARs表达的亚群。(图6)
图6. 中间神经元hTau积累通过减弱神经发生微环境中的GABA能传递损害AHN。 图6展示了GABA传感器成像结果、GABA水平变化、GABA代谢相关蛋白质表达分析,以及GAD67磷酸化下调等分子机制。
2.8 通过THIP增强GABA能传递挽救中间神经元hTau诱导的AHN缺陷
为测试增强GABA能传递是否能挽救中间神经元hTau过表达诱导的AHN缺陷,小鼠皮下注射4,5,6,7-四氢异噁唑并[5,4-c]吡啶-3-醇(THIP,也称为gaboxadol),每隔一天一次,持续一个月(3 mg/kg)。THIP是δ-containing GABAARs的激动剂,主要在此用于抑制hTau诱导的兴奋性神经元过度激活,同时增强对NSCs、IPCs和未成熟GCs的紧张性GABA能输入。
我们观察到THIP有效挽救了中间神经元hTau过表达诱导的AHN缺陷,表现为静止NSC形态学数量增加、BrdU和DCX标记细胞数量增加、新生GCs树突长度和棘密度增加,以及DG ML中GFAP免疫反应性星形胶质细胞减少,与过表达hTau但仅给予溶媒的对照组相比。(图6K-L)
2.9 THIP改善3xTg AD小鼠的AHN缺陷和认知障碍
最后,我们测试了THIP预先给药是否能预防6月龄3xTg AD小鼠的AHN缺陷并改善认知功能,此时在DG GABA能中间神经元中观察到显著的pTau积累,且局部GABA能传递被抑制。
6月龄3xTg小鼠中AHN受损,表现为BrdU和DCX标记细胞数量减少、新生神经元树突长度和棘密度减少,但与同龄野生型小鼠相比DG ML中星形胶质细胞增加,而皮下给予THIP(3 mg/kg,每隔一天一次,持续8周)改善了这些缺陷中的大多数。
此外,由于据报道3xTg小鼠在4-6月龄表现出轻度认知障碍,这可能至少部分归因于AHN缺陷。因此,我们测试了THIP是否能改善3xTg AD小鼠中与AHN相关的空间识别。在物体位置识别任务中,6月龄3xTg小鼠表现较差,表现为测试阶段对新位置移动物体的偏倚分数较低,而THIP改善了这种损伤。
我们还测试了THIP对情境模式分离的影响。在该范式中,每只小鼠在第一天通过在情境A中给予65 mA足部电击获得恐惧记忆,第二天测试以区分非常不同的情境(情境B)。3xTg和野生型小鼠在区分情境A和B方面表现良好,THIP效果有限。在接下来的几天,当小鼠被训练区分另一对共享更多特征的情境(情境A,与足部电击配对;情境C,无足部电击配对)时,然而,3xTg小鼠学习区分情境C和A的速度比野生型小鼠慢得多,表明情境模式分离受损,而THIP预先给药显著减轻了3xTg小鼠的这种损伤。以第12天小鼠表现为例,给予THIP的3xTg小鼠亚组(而非溶媒组)已成功学会区分相似情境,在情境C中比在情境A中花费更少的冻结时间。
此外,THIP还下调了3xTg小鼠DG中tau的磷酸化和聚集,但对淀粉样病理学影响非常有限,实际上在6月龄3xTg AD小鼠的DG中淀粉样病理学尚未显现。
这些数据共同表明,通过预先给予THIP增强GABA能张力有效减轻了3xTg AD小鼠的AHN缺陷并改善了AHN依赖性认知功能。(图7)
三、讨论3.1 GABA能中间神经元中tau积累损害AHN
AHN随衰老下降但持续存在。然而,AD样pTau积累,特别是在GABA能中间神经元中的积累,通过减弱GABA能张力和解除神经发生微环境中局部神经环路的抑制,加速了AHN的年龄依赖性下降。事实上,GABA能中间神经元似乎是对AD因素(如ApoE4和tau病)高度易感的亚群。
GABA能中间神经元有两种主要亚型,即PV和SST阳性神经元。这两种中间神经元亚群中pTau积累对局部兴奋性神经元的兴奋性产生相反的失调作用,但都损害了AHN。PV或SST中间神经元分泌的GABA都可以直接作用于NSCs和未成熟神经元以塑造AHN。另一方面,由于对PV或SST中间神经元的GABA能输入减少导致的DG兴奋性神经元的过度激活或激活不足,最终都可导致AHN缺陷,如本研究中观察到的。
值得注意的是,不应排除兴奋性或未成熟神经元中pTau积累对AD相关AHN缺陷的可能贡献,尽管与GABA能中间神经元相比,在这些细胞中选择性hTau过表达对AHN产生的影响较小。此外,尽管细胞外Aβ沉积在AHN失调中的作用仍有争议,但可溶性Aβ如何在AD早期阶段影响AHN值得未来研究。
3.2 中间神经元hTau积累失调GABA代谢并解除局部神经环路抑制
中间神经元hTau过表达下调局部GABA水平,可能是通过抑制GAD67磷酸化来失调GABA合成。一个有趣的问题是,tau作为一种胞质蛋白,如何导致pGAD67和GAT1的下调。本研究中的蛋白质组学和磷酸化蛋白质组学分析揭示了多种蛋白激酶表达或磷酸化的变化,如蛋白激酶C epsilon(PKCε)、蛋白激酶A(PKA)和丝裂原活化蛋白激酶(MAPK)。这些激酶可能以某种方式在GAD67磷酸化中发挥重要作用以失调GABA合成。hTau如何诱导激酶/磷酸酶失衡并导致GAD67去磷酸化的分子机制仍有待阐明。
hTau积累损害GABA能传递,从而解除局部兴奋性神经元的抑制。观察到hTau以较小幅度抑制gamma振荡,可能是由于PV中间神经元的任何潜在功能缺陷,PV中间神经元主要驱动gamma振荡并塑造AHN。在正常条件下,大多数NSCs保持静止状态,响应来自局部中间神经元的紧张性GABA能输入以及与兴奋性神经元直接细胞-细胞粘附介导的中间神经元信号。GABA能传递损害和谷氨酸能神经元过度激活都可迫使NSC从静止状态退出以增强其对称性自我更新,并最终产生星形胶质细胞增生而非神经发生。
细胞外GABA可直接结合NSCs和IPCs表面的δ-containing GABAARs,激活如钙调神经磷酸酶/NFATc4信号等,以调节AHN。GABA能输入不足可能导致未成熟神经元的树突分化和整合缺陷。尽管NSCs或IPCs是否能直接响应邻近兴奋性神经元分泌的胞外谷氨酸仍不清楚,近期研究表明GCs和苔藓细胞的解除抑制也可能通过失调GC-NSC直接粘附介导的跨细胞EphB2激酶依赖性信号或通过分泌在塑造神经发生中起重要作用的前炎症细胞因子或神经肽来误导AHN的命运。
3.3 增强GABA能传递挽救hTau诱导的AHN缺陷并改善情境识别
GABAAR激动剂如THIP和戊巴比妥在AD中有效保护AHN。这是因为,迄今为止,没有有效药物能阻止AD进展。通过运动或促神经发生剂如BDNF或P7C3促进内源性AHN,可能为预防AD早期阶段的认知障碍带来新希望。
或者,通过将干细胞或胚胎神经元移植到AD大脑中引入神经发生,以修复甚至重建退化的神经网络,对晚期AD治疗具有潜力。然而,迫切需要确保内源性NSCs或移植干细胞能在AD大脑中正常增殖、分化和随后整合到现有神经回路中,因为AD大脑中的许多病理因素可能误导神经发生的命运。我们的结果强烈建议未来试验中促神经发生剂或细胞治疗与GABA能增强剂的联合应用。
此外,GABA能中间神经元的功能缺陷或丧失在AD大脑中广泛观察到,近期研究表明将GABA能祖细胞移植到AD小鼠海马中有效改善AD样病理学和认知功能。因此,NSCs/胚胎神经元与GABA能祖细胞的共移植可能在AD细胞治疗中获得更好结果。
总之,我们在本研究中发现,海马神经发生微环境中GABA能中间神经元的hTau积累通过抑制GABA能传递和解除局部神经环路抑制损害了AHN。通过THIP增强GABA能传递对恢复AHN和改善AD小鼠的空间识别有效。
四、实验方法概述4.1 关键资源
本研究使用了多种抗体,包括抗ABAT、抗AT8、抗β-actin、抗BrdU、抗CaMKII、抗DCX、抗Flag、抗GABA、抗GABAAR各亚基(α1、β1、γ2、δ)、抗GAD65、抗GAD67、抗GAT1、抗Gephyrin、抗GFAP、抗Iba1、抗ID4、抗MCM2、抗NeuN、抗NeuroD1、抗Parvalbumin、抗磷酸化Ser/Thr、抗Somatostatin、抗SSADH、抗Synaptophysin、抗Synaptotagmin、抗Tau(多种磷酸化位点)、抗Paired Helical Filaments(6E10)、抗VAMP2、抗VGAT等。
病毒载体包括:rAAV-EF1α-DIO-tau-mCherry-WPRE-pA、rAAV-EF1α-DIO-mCherry-WPRE-pA、rAAV-CaMKIIα-GCaMP6f-WPRE-pA、rAAV-CaMKIIα-EGFP-WPRE-pA、rAAV-hSyn-iGABASnFR-WPRE-SV40 pA等,均来自BrainVTA;以及多种pROV和pAOV载体。
4.2 实验模型
人脑切片来自中国医学科学院北京协和医学院人脑库,AD诊断依据AD登记联盟和美国国家老龄化研究所的标准。
动物模型包括:Nestin-GFP小鼠(赛业生物科技)、3xTg小鼠(Jackson Laboratory,RRID:IMSR_JAX:031988)、野生型129小鼠(Jackson Laboratory,RRID:IMSR_JAX:002448)、Dlx5/6-Cre-ires-EGFP小鼠(杨赠刚教授馈赠)、Parvalbumin-Cre小鼠(万实验室)、SST-Cre小鼠(Jackson Laboratory,RRID:IMSR_JAX:013044)。所有小鼠在标准实验室条件下饲养,12小时明暗交替,自由取食饮水。所有实验均使用雄性小鼠,体重20-30克。
4.3 主要实验方法
立体定位注射:小鼠麻醉后固定于立体定位仪,根据实验需求注射不同组合的AAV和逆转录病毒,注射位置为背侧DG(AP -1.9 mm,LM ±1.1 mm,DV -2.0 mm)。
免疫染色:小鼠经心脏灌注4%多聚甲醛固定,脑组织冰冻切片(50 μm),进行免疫荧光或免疫组化染色。人脑切片需进行抗原修复。
AHN和星形胶质细胞增生评估:仅评估背侧DG(约AP -1.7至-2.5)。使用Nes-GFP或Dlx5/6-CIE:Nes-GFP小鼠评估NSC形态。BrdU(50 mg/kg)连续5天腹腔注射评估细胞增殖。每第五张切片染色计数,乘以5估算背侧DG总细胞数。使用Simple Neurite Tracer插件和ImageJ软件进行Sholl分析评估树突长度和复杂性。
FACS和实时q-PCR:海马组织机械解离、胰酶消化后制备单细胞悬液,通过FACS分选mCherry或GFP阳性细胞。RNA提取后使用单细胞序列特异性扩增试剂盒预扩增,进行qPCR检测。
蛋白质组学和磷酸化蛋白质组学分析:DG组织液氮研磨、超声裂解后,进行还原、烷基化、胰酶消化、TMT标记、高pH反相HPLC分级。磷酸肽使用IMAC微球富集。使用Q Exactive Plus质谱仪采集数据,Maxquant搜索引擎分析。
在体电生理记录:小鼠麻醉固定后,植入定制记录装置(4个可移动钨丝四极电极和2个参考电极)至SGZ。小鼠在T迷宫中自由活动,使用RHD2000记录系统采集信号,放大并数字化(20 kHz)。使用KlustaKwik进行峰电位分类,MATLAB分析数据。
在体光纤记录:光纤套管植入SGZ,使用光纤光度测量系统记录GCaMP6f或iGABASnFR信号,LED功率65 μW,MATLAB分析数据,ΔF/F = (F - F0) / (F0 - Foffset) × 100%,以5% ΔF/F为阈值计数反应。
Western blotting、dot blotting和免疫共沉淀:背侧海马组织RIPA裂解,SDS-PAGE分离,转膜后使用IRDye®偶联二抗检测,Odyssey成像系统可视化,Quantity One软件定量。
ELISA:背侧海马组织RIPA裂解,离心后取上清检测可溶性Aβ,沉淀用70%甲酸重悬检测不溶性Aβ。使用Elabscience试剂盒检测Aβ1-40和Aβ1-42。
Thioflavin T染色:脑切片TBS洗涤后,0.3% Thioflavin T(50%乙醇溶解)室温孵育10分钟,50%乙醇脱色,TBS洗涤,DAPI复染。
Congo red染色:脑切片在氯化钠溶液(30% NaCl,80%乙醇,0.1‰ NaOH)室温孵育20分钟,0.2% Congo red(含0.1‰ NaOH)孵育40分钟,乙醇脱色,PBS水化,Nissl染色液复染。
行为学测试:
物体位置识别:小鼠适应3天后,在探查阶段将小鼠放入含两个相同物体(塑料圆柱)的盒子中自由探索5分钟。随后移除小鼠2分钟,清洁后将其中一个物体移至新位置。测试阶段小鼠再探索5分钟,记录并分析视频。偏倚分数 = (B探索时间 - A探索时间) / (B探索时间 + A探索时间)。
情境辨别:物体位置识别测试5天后开始。第1天,小鼠在情境A(配额外白噪音)中探索3分钟后给予2秒65 mA足部电击,再停留1分钟。第2天,小鼠先在非常不同的情境B(光滑塑料地板,无白噪音,圆柱形墙壁)中探索3分钟,约5小时后再放入情境A探索3分钟,无电击。随后几天,小鼠训练区分相似情境(情境A与情境C:钢条地板,无白噪音,蓝色照明,塑料A型框架插入物)。双交替 schedule(A-C,C-A,A-C等)。辨别分数 = (A冻结时间 - C冻结时间) / (A冻结时间 + C冻结时间)。
4.4 量化和统计分析
数据以均值±SEM表示。使用SPSS Statistics、MATLAB或GraphPad Prism分析。使用未配对或配对双尾t检验、ANOVA(单因素、双因素或重复测量)、双尾Fisher精确检验、Mann-Whitney检验和Tukey多重比较事后检验,p < 0.05认为统计学显著。
深圳市富临神通科技有限公司(原“东莞市富临塑胶原料有限公司”)是Intan Technologies中国代理商,采购Headstages、芯片、记录系统、刺激/记录系统、SPI线、芯片等电生理产品请立即联系我们。