

原创 鲁波 环境极客
本文是"环境极客"聚焦 Roothans et al. (2024) 的好氧反硝化研究,解读"代谢准备态"概念及其对工程设计的颠覆性影响。
引子:你的碳源账本,可能一直算错了
你一定遇到过这种情况——
进水 C/N 明明够用,按 ASM 模型算过,缺氧段碳源绰绰有余。但出水 TN 就是达不到设计值。加大回流比,效果有限。加大外碳源投加量,TN 下来了,但运行成本飙升,碳足迹报告也不好看。
你有没有想过:碳源不是不够,而是在好氧池里就被"偷走"了?
这不是猜测。2024年,代尔夫特理工大学 van Loosdrecht 团队在微生物学顶刊 The ISME Journal 上发表了定量证据:在溶解氧高达 7.5 mg/L 的好氧条件下,超过1/3的有机底物被反硝化菌用硝酸盐而非氧气来呼吸。
DO = 7.5 mg/L。不是微缺氧,不是生物膜内部的氧梯度假象。是真真切切的高DO好氧环境,反硝化菌在全力运转。
更不安的是:这些在好氧条件下运行的反硝化,会产生大量 N₂O——温室效应是 CO₂ 的 273倍。你以为好氧区的 N₂O 全是硝化菌(AOB)搞的?可能只说对了一半。
另一半嫌疑犯,一直藏在曝气池里。
一、教科书哪里出了问题?
翻开任何一本环境工程教材:反硝化菌是兼性厌氧菌,有氧就不反硝化。
这条规则的实验基础无可挑剔。微生物学家把纯培养菌株在好氧条件下培养数天,切换到缺氧后观察反硝化启动;反过来,把反硝化菌暴露在氧气中数天,观察反硝化停止。结论一致:氧气出现,反硝化就关。
逻辑完美。数据清晰。写入教材,毫无争议。
但问题出在"时间尺度"上。
实验室给了细菌几天来完成蛋白质更新——旧的反硝化酶被降解,新的有氧呼吸酶被合成。一切按教科书基因调控发生。
但在一座真实的污水厂里,细菌经历的不是"几天好氧 + 几天缺氧"。以氧化沟为例,微生物随水流在好氧区和缺氧区之间快速循环,一个完整周期可能只有几十分钟。交替曝气工艺中,切换周期甚至被压缩到分钟级。
工程时间尺度远快于蛋白质更新的生物时间尺度。
蛋白质不是电灯开关。
Roothans 等人正是抓住了这个时间尺度错配,设计了一个巧妙的实验来定量验证。
二、实验设计:三道防火墙,堵死一切替代解释
2.1 两组反应器:切换频率相差 8 倍
Roothans 等人在代尔夫特理工大学建立了两组 1 升连续流搅拌反应器(CFSTR),运行 96 天:
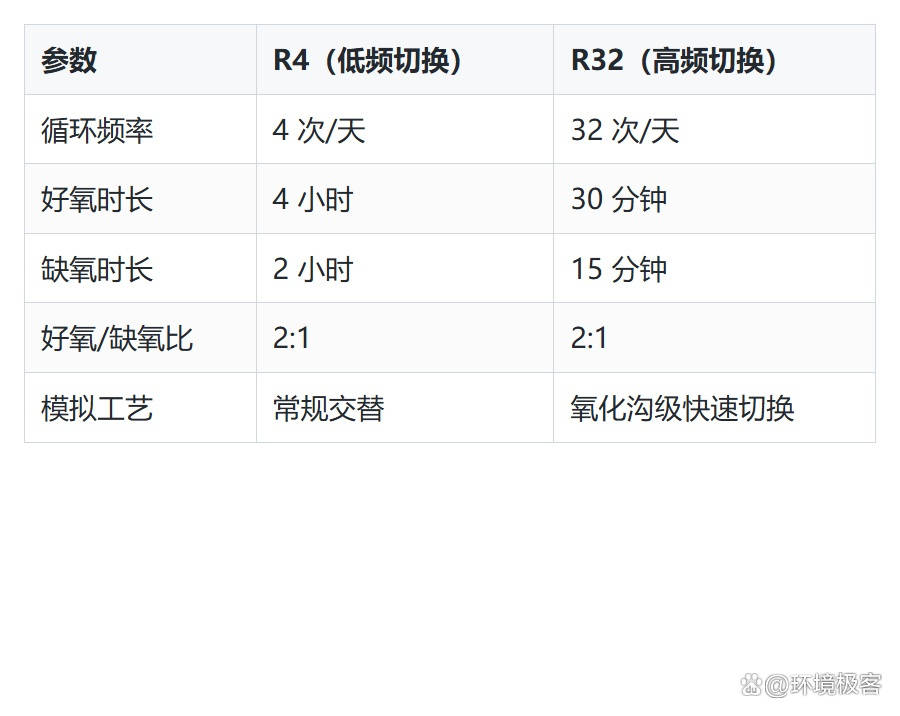
碳源采用乙酸、丙酸和丁酸混合VFA,碳限制运行——稳态期间出水VFA始终低于检测限。物料衡算闭合度极高(碳平衡 103%,电子平衡 100%–101%)。
2.2 三道防火墙:排除一切干扰
这个实验最精妙之处,不在于发现了什么,而在于堵死了一切替代解释:
第一道:ATU 硝化抑制剂。 持续投加烯丙基硫脲,选择性关闭自养硝化。实验中所有氮转化——包括好氧段的 N₂O——都只能来自异养反硝化菌,不可能被归咎于 AOB。
第二道:浮游态培养 + 500 rpm 高速搅拌。 全程显微镜确认培养物保持均匀分散,不形成絮体或生物膜。这彻底排除了"微缺氧微环境"假说——过去常有学者用生物膜内部缺氧微区来解释好氧反硝化现象。Roothans 的设计封堵了这个漏洞。
第三道:好氧阶段 DO 近饱和。 R4 好氧段平均 DO = 7.5 ± 0.2 mg/L,R32 = 6.8 ± 0.3 mg/L——远超任何合理的"微缺氧"阈值。在这种氧浓度下,如果反硝化菌仍在使用硝酸盐呼吸,只有一个解释:反硝化酶系统在好氧条件下持续工作。
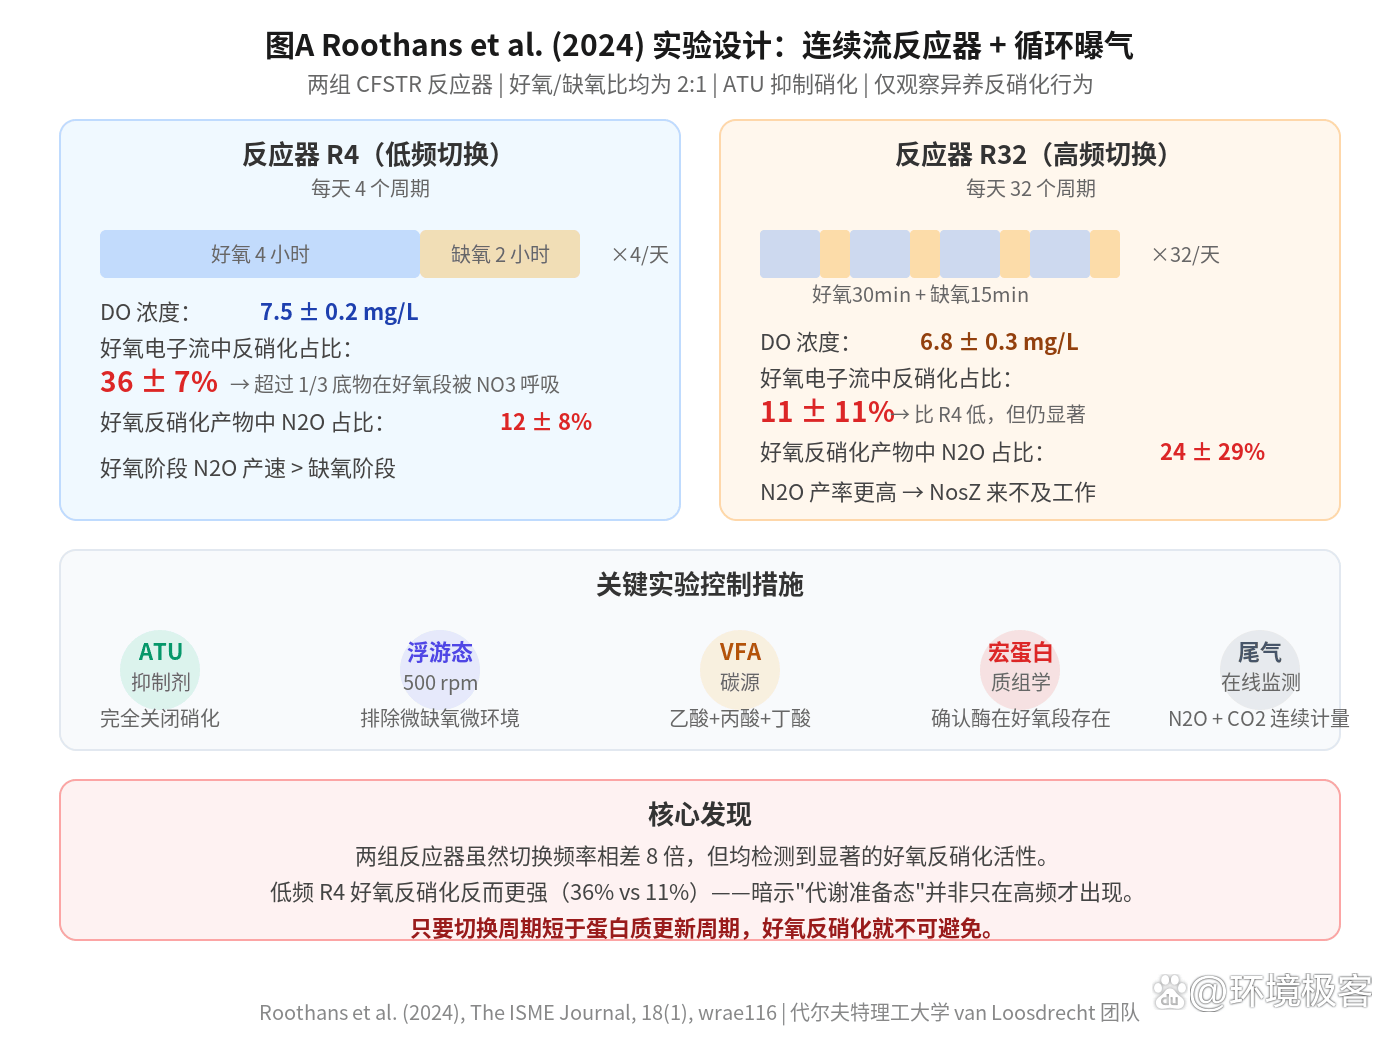
图A|Roothans et al. (2024) 实验设计。 两组连续流反应器分别以4次/天和32次/天的频率循环好氧/缺氧,三道控制措施排除AOB、微缺氧微环境和低DO干扰。来源:Roothans et al. (2024), The ISME Journal, 18(1), wrae116.
三、核心发现:1/3 碳源在好氧段被"偷偷"反硝化
3.1 电子流分配:反直觉的数据
结果令人震惊。
R4(低频切换,6 小时周期):好氧阶段 36 ± 7% 的电子传递链以 NO₃⁻ 为最终电子受体,而非 O₂。
超过三分之一的有机底物,在 DO 高达 7.5 mg/L 的条件下,选择了硝酸盐来呼吸。
R32(高频切换,45 分钟周期):这一比例为 11 ± 11%——低于 R4,但仍然统计学显著。
这里有一个反直觉的细节:低频切换组的好氧反硝化占比反而更高。 原因不复杂——R4 的好氧阶段长达 4 小时,反硝化持续进行并累积了更多转化量;R32 好氧阶段只有 30 分钟,虽然酶同样存在,但总反应时间短,累积比例低。
这反而更有力地说明了问题的严重性:即便在长达 4 小时的持续高DO好氧条件下,反硝化菌依然坚持用硝酸盐呼吸。
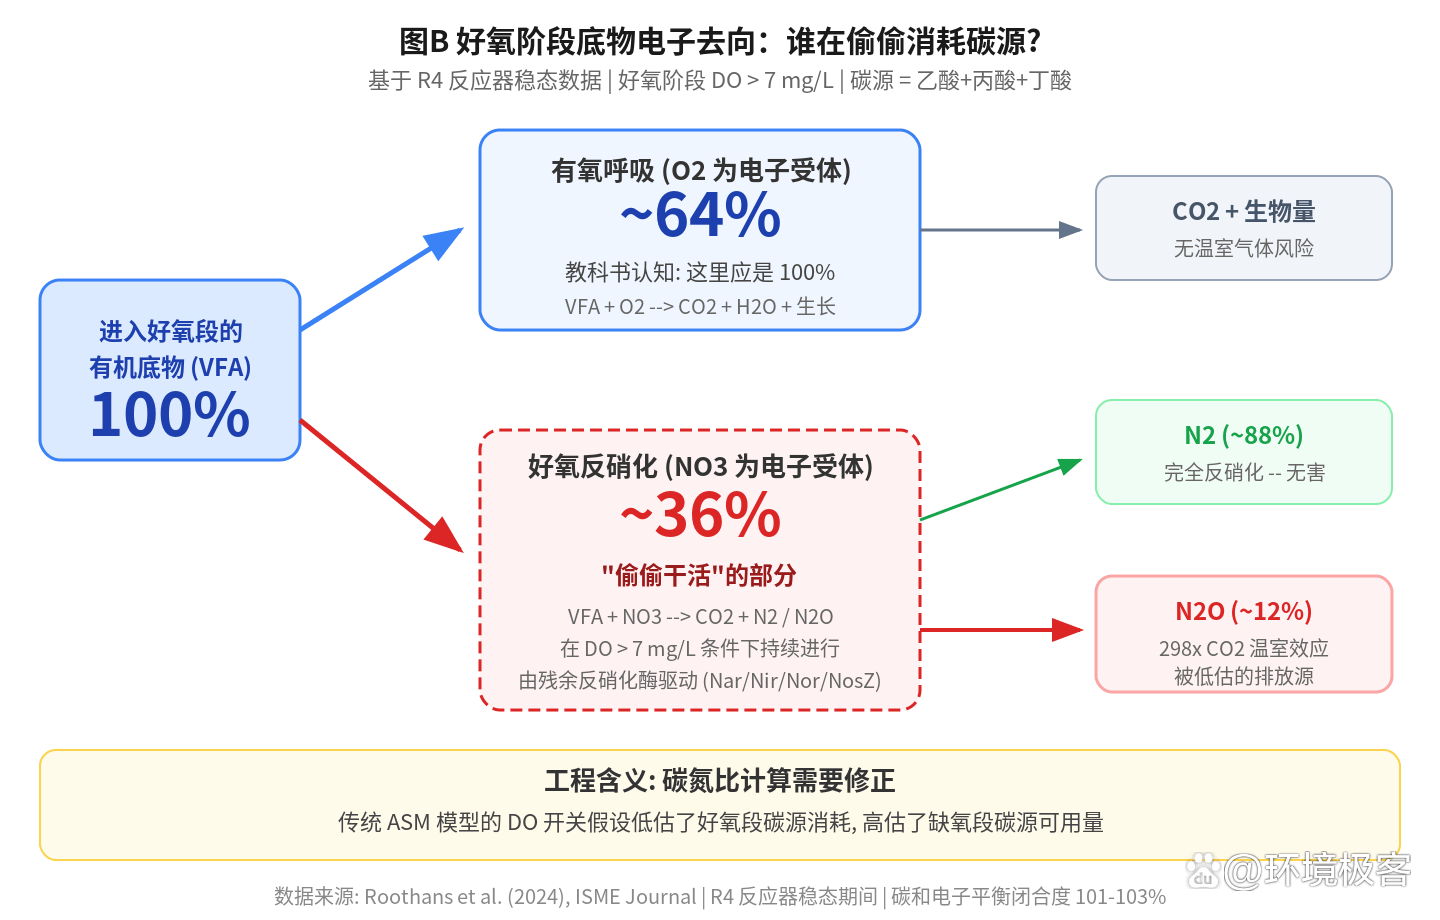
图B|好氧阶段底物电子去向。 R4反应器中36%的电子流流向NO₃⁻而非O₂——意味着超过1/3的碳源在好氧池被反硝化消耗,从未到达缺氧段。来源:Roothans et al. (2024), The ISME Journal, 18(1), wrae116.
3.2 N₂O:比"偷碳"更严重的问题
碳源被偷只是第一层坏消息。第二层更严重。
在 R4 中,好氧阶段被反硝化的硝酸盐有 12 ± 8% 以 N₂O 形式释放。在 R32 中,这一比例高达 24 ± 29%。
高频切换组虽然总的好氧反硝化比例低,但 N₂O 产率更高——暗示在快速交替中,NosZ 酶(负责将 N₂O 还原为 N₂ 的最后一步)更容易受到好氧环境的活性抑制。反硝化做到了倒数第二步就停了。
整个实验期间,好氧阶段的 N₂O 产速始终高于或等于缺氧阶段。
这直接推翻了"好氧段 N₂O 只能来自硝化菌"的假设。
3.3 蛋白质组学:酶的"在场证明"
物料衡算告诉了我们"多少"。宏蛋白质组学告诉了我们"为什么"。
研究团队用鸟枪法蛋白质组学分析了好氧和缺氧阶段的全蛋白谱。结果明确:四种核心反硝化酶——Nar、Nir、Nor、NosZ——在好氧和缺氧阶段都被持续检测到,丰度没有显著差异。
微生物没有在好氧阶段降解这些酶。它们压根来不及。
蛋白质的半衰期通常在数小时到数天,远长于 45 分钟甚至 6 小时的循环周期。细菌被迫保持一种"代谢准备态"(metabolic preparedness)——同时维持有氧呼吸和反硝化两套酶系统。
这就好比一个员工上白班时没把夜班的工具收起来——不是忘了,是换班太快根本来不及收。于是白班时一手干白班的活,一手还在用夜班的工具偷偷加工。
此外,宏基因组分析揭示了一个重要补充:这些富集群落中,几乎没有一种细菌独立完成 NO₃⁻ → N₂ 的全部四步。不同菌株各负责一到两个步骤,是"分工协作"完成的。碳源种类会选择性激活不同功能模块——如果某步骤的执行者受抑制,中间产物 N₂O 就会积累。分工机制的基因组学证据见本系列第③篇。
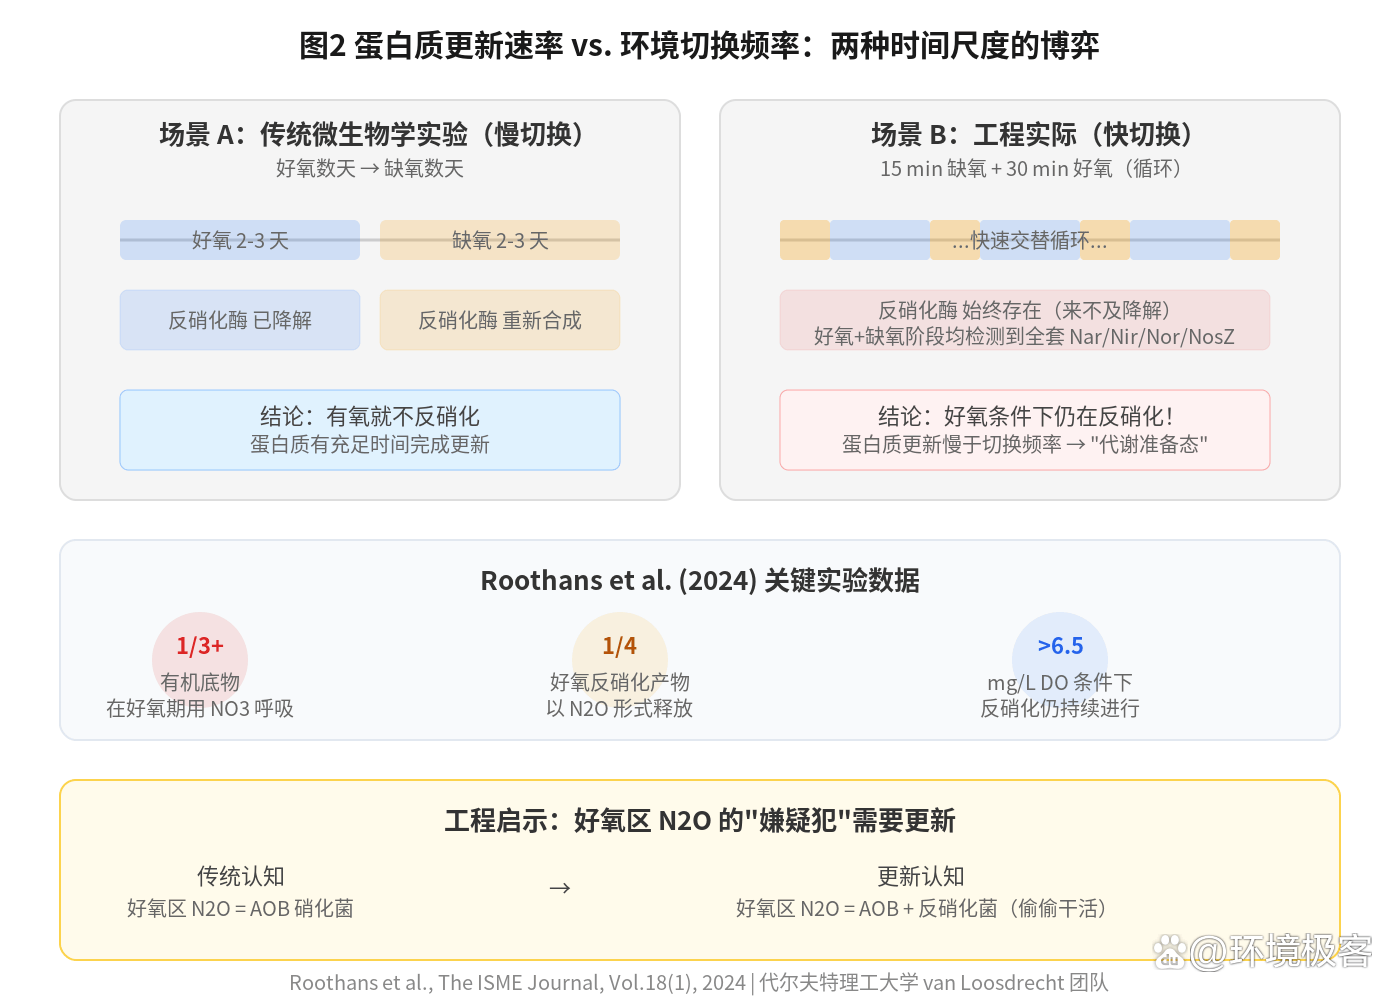
图2|代谢准备态的本质:两种时间尺度的博弈。 当环境切换频率快于蛋白质更新速率时,反硝化酶在好氧段不会被降解——细菌被迫维持"兼容模式"。这是进化优势,但也是N₂O排放的温床。来源:基于 Roothans et al. (2024) 数据绘制。
四、ASM 模型的"DO 开关"失灵了
4.1 模型假设 vs. 实测数据
在所有版本的活性污泥模型(ASM1/2/2d/3)中,反硝化都被一个 Monod 开关控制:
$r_{denit} = \mu_H \cdot X_{BH} \cdot \frac{S_S}{K_S + S_S} \cdot \frac{K_{OH}}{K_{OH} + S_O} \cdot \frac{S_{NO}}{K_{NO} + S_{NO}} \cdot \eta_g$
其中 $K_{OH}/(K_{OH}+S_O)$ 是关键——当 DO 远高于半饱和常数 $K_{OH}$(通常取 0.2 mg/L)时,这个开关趋近于零。
模型预测:DO > 2 mg/L,反硝化速率≈零。
实测数据:DO = 7.5 mg/L,反硝化贡献 36% 电子流。
问题不在于溶解氧对酶活性的即时抑制,而在于酶本身是否存在。ASM 隐含假设反硝化酶在好氧条件下不存在或迅速失活,但蛋白质组学证明酶始终存在,且持续有活性。
4.2 模型需要什么?
要准确描述这个现象,模型需要两个传统 ASM 没有的维度:
第一,酶的时间常数。 增加一个"酶库"状态变量,其变化速率由蛋白质合成和蛋白质降解两个过程决定。只有当好氧停留时间远长于酶半衰期时,"DO 开关"才是合理的近似。
第二,历史路径依赖。 好氧反硝化速率不是由当前 DO 决定,而是由此前缺氧阶段的酶积累历史决定。这是典型的滞后效应——系统的当前状态取决于历史路径,而非仅取决于当前条件。
van Loosdrecht 在演讲中坦承了这个建模困难:N₂O 排放本质上是两个大数相减的结果——产生量减去消费量。1% 的偏差反映在排放数据上就可能是几倍的波动。如果模型的基础假设本身就忽略了一个贡献 10%–36% 电子流的过程,精确预测 N₂O 排放几乎不可能。
五、好氧区 N₂O 的"嫌疑犯名单"需要更新
过去十年的主流认知是:
- 好氧区 N₂O → 主要来自 AOB 的"硝化细菌反硝化"途径
- 缺氧区 N₂O → 主要来自异养反硝化不完全
Roothans 等人加入了第三个嫌疑犯:好氧区的反硝化菌。
在动态系统中,反硝化菌在好氧条件下继续反硝化,而且由于 NosZ 酶活性受到好氧抑制,反硝化停留在 N₂O 这个中间产物上的概率更高——R32 反应器中高达 24% 的好氧反硝化产物是 N₂O。
这直接挑战了一个流行的诊断逻辑——"好氧区检测到 N₂O,就一定是 AOB 在搞事"。 实际上,可能是反硝化菌在好氧池里偷偷反硝化,但只做到了 N₂O 就停了。
荷兰全规模监测表明 N₂O 而非电力才是碳足迹主项(详见本系列第⑧篇)。如果不知道这些 N₂O 到底来自 AOB 还是反硝化菌,减排策略就可能打偏方向。
这类"基因有 ≠ 蛋白在"的认知偏差,将在本系列第④篇《污水厂里的牛与兔子》中详细拆解。
六、对你的处理厂意味着什么?——三张自查清单
自查一:碳源账本
传统设计中,C/N 计算基于一个前提:好氧段消耗碳源只用于有氧呼吸和菌体合成,所有"用于反硝化的碳源"都在缺氧段消耗。
但如果 1/3 底物在好氧段就被反硝化消耗了,缺氧段实际可用碳源比你算的少了一大截。
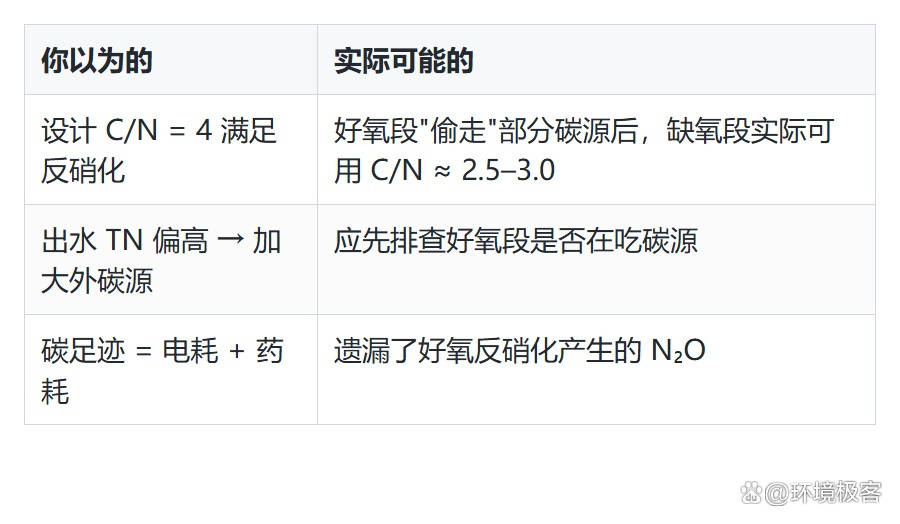
对冲效应需要注意:好氧段反硝化虽然消耗碳源,但同时也消耗了硝酸盐——回流到缺氧段的 NO₃⁻ 负荷也少了。净影响是碳源减少和硝酸盐减少之间的赛跑。但由于好氧反硝化产 N₂O 概率更高(NosZ 受抑制),从碳足迹角度看,这不是"白捡的脱氮"。
自查项:如果你的厂出水 TN 长期在设计值附近挣扎、外碳源投加量比模拟值高 20%–30%,好氧段的"碳源偷窃"可能是原因之一。
自查二:外碳源选择
van Loosdrecht 在演讲中特别强调:投加葡萄糖、糖类或甘油作为外碳源时,容易导致 N₂O 排放激增。 多个全规模处理厂已证实这一点。
结合"好氧反硝化"机制,可能的解释是:易发酵碳源促进了产酸发酵菌群增长,其代谢产物干扰了反硝化分工链中 NosZ 环节——反硝化到 N₂O 就停了。
自查项:如果你的厂目前使用葡萄糖或甘油作为外碳源,且检测到好氧段 N₂O 偏高,建议测试切换为乙酸钠等不经发酵即可直接用于反硝化的碳源。
自查三:曝气控制逻辑
如果好氧区的反硝化菌也在产 N₂O,传统的"检测到 N₂O → 加大曝气量"可能适得其反。
更强的曝气确实能抑制 AOB 的反硝化途径 N₂O。但如果同时加速了好氧条件下反硝化菌的不完全反硝化,净效果可能为零甚至为负。
Roothans 的数据中一个关键细节:即使 DO 从 6.8 mg/L 提升到 7.5 mg/L(R32 → R4),好氧反硝化不减反增。在工程级别 DO 范围内(2–8 mg/L),提高曝气强度对抑制好氧反硝化几乎没有效果。
因为问题不在于"氧气不够抑制反硝化",而在于反硝化酶本身就存在,且不受 DO 控制。
自查项:如果你的厂已上线 N₂O 在线监测,检查好氧段 N₂O 浓度是否随 DO 升高而下降。如果不降反升,好氧反硝化可能是主要来源。不同工艺类型的 N₂O 排放因子差异及其与动态条件的反直觉关系,将在本系列第⑦篇中系统分析。
七、结语:当常识遇上工程时间尺度
回到文章开头——有氧就不反硝化。
这条规则在纯培养、长时间尺度的实验中完全正确。但把它直接套用到好氧/缺氧每隔十几分钟就切换一次的污水处理工艺中,就出了问题。
不是微生物学家搞错了。是工程时间尺度与生物时间尺度之间存在一个致命的不匹配。
当外界环境变化的频率快于蛋白质更新的频率时,细菌被迫维持一种"兼容模式"——同时保留好氧和缺氧两套呼吸工具。这种"代谢准备态"是微生物应对不确定环境的进化策略:与其每次从头合成一套新酶,不如同时维持两套,哪个能用就用哪个。
从进化角度看,这是竞争优势。能同时利用 O₂ 和 NO₃⁻ 两种电子受体的菌株,比只能用一种的获取更多能量,在群落竞争中胜出。
好氧反硝化不是一个 bug,而是一个 feature——只是这个 feature 对温室气体核算来说,是个坏消息。
van Loosdrecht 说了一句耐人寻味的话:
"来自微生物学的信息并没有错,但它是在与废水处理或自然系统无关的条件下获得的。"
科学没有错。错的是我们对它适用边界的理解。
如果你的同事还在用"好氧不反硝化"来做设计计算,把这篇转给他。
参考文献
- Roothans, N., Gabriëls, M., Abeel, T., Pabst, M., van Loosdrecht, M.C.M., & Laureni, M. (2024). Aerobic denitrification as an N₂O source from microbial communities. The ISME Journal, 18(1), wrae116.
- Kampschreur, M.J., et al. (2009). Nitrous oxide emission during wastewater treatment. Water Research, 43(17), 4093–4103.
- Henze, M., Gujer, W., Mino, T., & van Loosdrecht, M.C.M. (2000). Activated Sludge Models ASM1, ASM2, ASM2d and ASM3. IWA Publishing.
- van Loosdrecht, M.C.M. (2025). Keynote Speech: The Future of Nutrient Removal in Wastewater Treatment. [会议演讲].













