

皮层慢波是深睡眠和某些麻醉条件的标志性振荡,然而控制其动态的神经生物学机制仍不完全清楚。在此,我们研究了局部近红外(NIR)刺激对氯胺酮/赛拉嗪麻醉大鼠慢波活动的影响。使用硅基多模态光极,我们同时传递NIR光并记录初级体感(S1Tr)和顶叶联合(PtA)皮层跨层的局部场电位(LFP)和多单元活动(MUA)。NIR刺激诱导局部组织加热,导致慢波特性的可重复和可逆变化。具体而言,上状态持续时间缩短,下状态延长,上状态期间MUA振幅增加,状态转换处斜率更陡峭,表明神经元同步性增强。LFP振幅和频谱变化在皮层区域间有所不同:PtA表现出慢波(0.5–2 Hz)和高delta(2–4 Hz)频带活动增加,而S1Tr显示出降低的趋势。我们的发现表明,局部红外刺激可以可靠地调节皮层慢波动态,可能通过温度介导的神经元兴奋性变化实现。这种方法为精确、局部操作皮层网络活动提供了一种微创方法,并为慢振荡的生物物理调节提供了新的见解。
一、引言
皮层慢波是自然深睡眠的标志,也称为慢波睡眠。这些高振幅、节律性重复出现的神经模式不仅表征深睡眠,而且在某些麻醉条件下也会出现。例如,氯胺酮/赛拉嗪麻醉诱导一种稳定且规则的慢(约1 Hz)节律,由定型慢波组成,可在整个新皮层记录到。相比之下,乌拉坦麻醉产生的神经元活动模式更接近于自然睡眠期间观察到的模式。
在细胞水平上,这种慢节律表现为所谓的慢振荡,其特征在于几乎所有皮层神经元在两个明显不同的状态之间节律性交替:活跃期(上状态)后接静默期(下状态)。在上状态期间,神经元的膜电位去极化,导致突触活动和放电率升高,而在下状态期间,细胞显示超极化膜电位和完全抑制的尖峰活动。
基于我们目前的理解,慢振荡在丘脑皮层网络内产生,新皮层发挥核心作用。在体外和体内模型中,慢波通常起源于皮层的颗粒下层(特别是第5层),并在垂直(跨层)和水平(跨皮层区域)两个方向传播。尽管慢波具有复杂的传播动态,且几乎可以从任何皮层位点起始,但它们最频繁地从前部区域开始并向后部区域传播。此外,上状态在丘脑核之间的传播也被观察到。
慢波活动与清醒期间获得的记忆的巩固以及皮层网络中突触强度的稳态调节密切相关。此外,先前的发现表明,慢波通过促进清除清醒期间在大脑中积累的代谢废物,有助于睡眠的恢复功能。
先前的研究采用了各种技术来扰动自发性慢节律,以更好地理解其特性、潜在机制和功能意义。导致皮层活动快速和瞬时变化的扰动方法,如感觉、电、磁或光遗传刺激,可以可靠地改变正在进行的大脑状态,例如通过诱发或终止上状态。
其他研究评估了皮层温度对慢波动态的较慢和更复杂的影响,揭示了慢振荡的光谱和时间特性均存在温度依赖性变化。然而,这些操作通常涉及对相对较大的皮层区域(跨越数毫米)进行加热或冷却。
鉴于非快速眼动(NREM)睡眠期间出现的大多数慢波在空间上是局部化的,且局部慢波也出现在快速眼动(REM)睡眠和清醒期间,对皮层温度进行更局部的操作(以及由此对神经元活动的间接调节)可能揭示先前未被认识的慢波动态的额外方面。其中一种技术是红外神经调节——一种光生物调节形式,其中将脉冲或连续波红外光传递到大脑——在神经组织的局部受限区域产生受控加热。这种光热效应可以通过影响神经振荡来调节网络活动,并通过改变神经元的放电率来增加或减少其兴奋性。
在本研究中,我们使用穿透式多模态探针对麻醉大鼠的新皮层施加近红外(NIR)刺激,以研究组织局部温度升高如何调节由氯胺酮/赛拉嗪诱导的慢波活动的频谱、时间和层状特征。使用同一器件同时记录皮层电活动和NIR刺激。探针的植入硅柄用作波导,将发射的NIR光聚焦在柄尖附近的组织中。沿同一柄均匀分布的12个微电极用于跨皮层层记录局部场电位(LFP)和多单元活动(MUA)。我们分析了刺激引起的上状态和下状态持续时间的变化、上状态期间MUA的振幅、慢波的振幅以及LFP低频成分(< 4 Hz)的振幅谱。这些特征在颗粒上层和颗粒下层之间以及两个皮层区域之间进行了比较,即初级体感皮层和顶叶联合皮层。
二、方法
2.1 硅基光学探针
用于近红外刺激和电生理学记录的多模态探针(光极)由p型单晶硅制成的柄组成。柄长5 mm,横截面积为170 µm × 200 µm,既用作波导又用作线性电极阵列。为了减少插入过程中的组织损伤,柄以2α = 30°的尖端角度逐渐变细。NIR光从这个尖锐尖端发射。柄包括12个方形记录位点(30 µm × 30 µm),以100 µm的位点间距线性排列,覆盖约1.1 mm的垂直区域。第一个位点距离尖端200 µm。电极布线由铂(Pt)组成,记录位点涂有额外的多孔Pt层,以将其在1 kHz测量的电阻抗降低至89.6 ± 43.1 kΩ。
2.2 动物手术和光极植入
所有实验均按照2010年9月22日EC理事会指令(2010/63/EU)进行,所有程序均经HUN-REN自然科学研究中心动物护理委员会和匈牙利国家食品安全局审查和批准(许可证号:PE/EA/672-6/2021)。该研究按照ARRIVE指南进行。所有实验均在动物的休息期(光照期)进行,此时慢波睡眠的时间和自然发生慢波的密度最高。
对于急性体内实验,使用成年Wistar大鼠(n = 8;体重:331.25 ± 84.35 g,均值 ± 标准差;性别平衡)。手术程序、探针植入和电生理学记录与我们先前的研究类似。简要地说,通过腹腔注射氯胺酮(75 mg/kg)和赛拉嗪(10 mg/kg)诱导麻醉。为了在实验期间维持稳定且规则的皮层慢振荡,每小时通过肌肉注射补充剂量的氯胺酮/赛拉嗪。使用连接至温度控制器(Supertech,Pécs,Hungary)的恒温加热垫维持生理体温。麻醉大鼠的头部固定在立体定向框架(David Kopf Instruments,Tujunga,CA,USA)中,随后从颅骨顶部去除皮肤和结缔组织。
在四只动物中,在左脑半球上钻了一个约10 mm × 5 mm的颅骨窗口,以顶叶联合皮层(PtA;前后[AP]:+1 mm至-9 mm;内外侧[ML]:0.5 mm至5.5 mm;相对于前囟的坐标)为中心。这个大颅骨切开术是为了容纳放置在暴露皮层表面上的柔性微皮层脑电图(µECoG)阵列。该器件用于为单独的研究收集电生理学数据。32通道µECoG阵列具有一个圆形开口(直径800 µm),通过该开口植入光极以进行红外刺激和皮层内记录。在其余四只动物中,准备了一个3 mm × 3 mm的较小颅骨切开术(AP:-1.5 mm至-4.5 mm;ML:1.5 mm至4.5 mm,相对于前囟),以初级体感皮层的躯干区域(S1Tr)为目标进行光极插入。从这些大鼠获得的数据是我们先前研究中收集的较大数据集的一部分。
在插入位点,使用34号针小心去除硬脑膜,以最小化光极植入期间的皮层凹陷。光极安装在电动立体定向微操作器(Robot Stereotaxic,Neurostar,Tübingen,Germany)上,并以慢速(2–20 µm/s)垂直于皮层层插入至1.2 mm深度,以减少与插入相关的组织机械损伤。达到目标深度后,光极尖端位于颗粒下层(第5层底部或第6层;图1A)。光极尖端位置的选择基于先前的发现,这些发现表明深层在上状态的起始和维持中起关键作用。为了防止皮层组织脱水,定期将室温生理盐水溶液应用于大脑表面。由于室温盐水的局部应用可瞬时降低组织温度并可能与局部红外刺激的加热效应相互作用,因此在红外刺激方案期间不应用盐水。此外,盐水应用后,皮层温度迅速恢复至基线(约3 min内),因此预计对结果的影响可忽略不计。在实验结束时,给大鼠施用过量氯胺酮/赛拉嗪。随后,动物要么经心脏灌注(n = 5),要么通过过量异氟烷安乐死,并通过呼吸和心跳停止确认死亡(n = 3)。
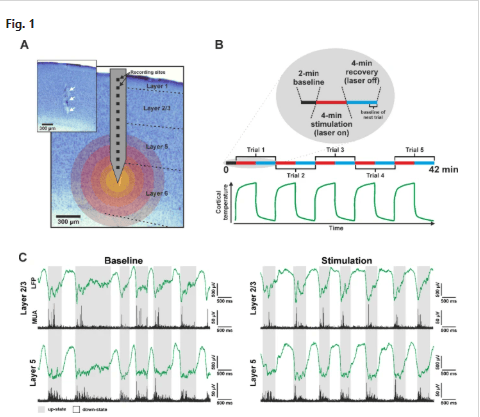
图1. (A) 实验装置。硅基光学探针(光极)叠加在包含光极轨迹(插图中白色箭头所示)的尼氏染色冠状脑切片上的示意图。皮层层的边界用黑色虚线标记。叠加在图像上的彩色圆圈表示受红外刺激影响的皮层区域的一部分。靠近光极尖端的较浅颜色表示刺激期间皮层温度的较高升高。(B) 红外刺激方案的示意图。在8只大鼠中的2只中,刺激仅施加2 min。底部:显示刺激方案期间皮层温度时间进程的示意图。(C) 来自单只大鼠基线期(OFF期最后1 min,左)和红外刺激期间(ON期最后1 min,右)第2/3层(上)和第5层(下)新皮层的代表性5秒局部场电位(绿色)和多单元活动(黑色)轨迹。灰色阴影表示上状态,而白色区域对应下状态。
深圳市富临神通科技有限公司是是 Intan Technologies、White Mountain Systems中国代理商,我们在神经科学领域拥有丰富经验。我们为客户提供:Headstages、脑机接口芯片、记录系统、刺激/记录系统、SPI线。
2.3 体内电生理学记录
使用Intan Technologies的Intan RHD2000电生理学记录系统(Intan Technologies,Los Angeles,CA,USA)和32通道头级,通过光极收集皮层电活动。以每通道20 kHz(一只动物为每通道30 kHz)的采样率和16位分辨率采集宽带(0.1–7500 Hz)连续信号。对于带有µECoG阵列的四只动物,使用第二个32通道头级记录ECoG信号;然而,这些数据未在本研究中分析。插入动物颈肌的不锈钢针在记录期间既用作参考电极又用作接地电极。
2.4 红外神经调节
使用光纤耦合激光二极管(最大输出功率70 mW,波长1550 nm;LPSC-1550-FG105LCA-SMA,Thorlabs GmbH,Bergkirchen,Germany)传递NIR光。激光由Keithley 2611B SYSTEM源表(Keithley Instruments Inc,Cleveland,OH,USA)以400 mA DC的恒定电流驱动。实验期间应用了两种略有不同的刺激方案。在2分钟基线记录期后,激光二极管激活2 min(n = 2只大鼠)或4 min(n = 6只大鼠),称为ON期。NIR刺激导致2 min和4 min ON期的估计温度升高分别约为4.5 °C和4.8 °C(基于我们先前研究中报告的体外测量;此处分析的S1Tr记录是在该研究期间收集的)。每个ON期后接4 min OFF期,在此期间激光二极管关闭,允许组织和温度恢复(图1B)。该ON-OFF循环连续重复五次,产生持续32 min(n = 2只大鼠)或42 min(n = 6只大鼠)的记录。重复将被称为试验。ON和OFF期的起始使用同一Keithley仪器产生的触发信号与电生理学记录同步。
2.5 组织学
为了可视化光极在脑组织中的轨迹并识别皮层层(图1A),我们遵循了先前描述的组织学程序。简而言之,神经数据收集后,一组大鼠(n = 5)用氯胺酮/赛拉嗪深度麻醉,并经心脏灌注100 ml生理盐水溶液,随后灌注250 ml含4%多聚甲醛的0.1 m磷酸盐缓冲液(pH 7.4)。固定的大脑在4 °C下储存过夜。随后,使用振动切片机(Leica VT1200,Leica Microsystems,Wetzlar,Germany)将脑组织切成60 µm厚的冠状切片。在0.1 M磷酸盐缓冲液中洗涤后,将切片转移到含明胶的培养皿中,安装在显微镜载玻片上并风干。随后对载玻片进行甲酚紫(尼氏)染色,在二甲苯中脱水,并使用DePex(SERVA Electrophoresis,Heidelberg,Germany)封片。最后,在配备数码相机(DP73,Olympus,Tokyo,Japan)的光学显微镜(Leica DM2500,Leica Microsystems)下拍摄包含光极轨迹的尼氏染色切片。由于硅柄的相对较大横截面积,光极的轨迹在脑切片中清晰可见。
2.6 数据分析
所有电生理学数据均使用基于MATLAB(MathWorks,Natick,MA,USA)的算法进行离线处理。由于皮层温度在NIR刺激停止后两分钟内恢复至基线值,我们将四分钟长OFF期的最后一分钟定义为随后刺激试验的基线(BL)期(图1B)。对于第一次刺激试验,基线期是包含自发性活动的皮层记录的第二分钟。所有后续分析均分别应用于ON期的每一分钟。然而,对于呈现的主要分析(图2、3、4和5),我们将基线期的值与刺激期最后一分钟的值进行比较,在此期间红外刺激的效果通常最强。为了可视化状态持续时间的分布(图2D–E),使用ON和OFF期的最后两分钟以确保有足够的上状态和下状态数量。计算值在五个试验和对应于同一层的通道之间取平均。使用置换检验,我们发现2 min和4 min NIR刺激后获得的结果之间没有统计学显著差异;因此,这些数据被合并。
2.6.1 记录位点的层状位置
探针尖端位于颗粒下层,而微电极同时从多个层记录。为了确定光极位点的精确层状位置,我们利用了注册的皮层活动模式以及(如有)解剖信息(包含光极轨迹的尼氏染色冠状脑切片)。根据我们先前工作中建立的标准,每个记录位点被分配到特定的皮层层。
在氯胺酮/赛拉嗪麻醉下,浅层通常表现出稀疏的自发性群体活动,与深层相比活跃的神经元较少。由于第1层缺乏尖峰活动,定位于该层的位点被排除在进一步分析之外。位于第2层和第3层内的记录位点被归为一组。由于第4层是薄层,且在顶叶联合皮层中实际上不存在,因此可能位于该层(在S1Tr中)的位点数据也被排除。
第5层包含跨层最大的锥体细胞的胞体,在氯胺酮/赛拉嗪麻醉下显示最强的神经元活动。该层在慢波的产生中也起关键作用。第5层中的记录位点通常用作识别其他层的参考,因为该层可以最可靠地定位。最后,由于只有相对较少位点位于第6层,因此未分析该层的活动。因此,本研究主要关注两个皮层层中的神经元活动:第2/3层和第5层。
2.6.2 基于多单元活动的状态检测
为了检查NIR刺激引起的上状态和下状态持续时间的变化以及神经元群体活动(多单元活动;MUA,图2)的变化,我们首先识别慢振荡状态的起始。此处应用的基于MUA的状态检测算法改编自研究人员(2016)。简要地说,通过使用三阶零相移巴特沃斯滤波器在500至5000 Hz之间对宽带记录进行带通滤波来提取MUA。随后对所得信号进行整流并从20 kHz下采样至2 kHz。来自所有12个通道的下采样MUA信号被求和(排除非功能性或噪声通道),然后对所得单通道时间序列进行平滑以获得皮层群体活动的包络,使用三阶零相移巴特沃斯低通滤波器(50 Hz截止频率)。该信号被称为平滑群体活动(SPA)。最后,为了检测上状态和下状态起始时间,基于在50 ms短时间段内选择的SPA信号的均值和标准差计算振幅阈值,该时间段在下状态内选择。检测算法施加两个约束:最小上状态持续时间50 ms和最小下状态持续时间100 ms。检测到的上状态和下状态起始被保存用于后续分析。
2.6.3 上状态和下状态持续时间的计算
使用先前提取的上状态和下状态起始时间来计算上状态和下状态持续时间。给定上状态(或下状态)的持续时间定义为当前上状态(或下状态)起始与随后下状态(或上状态)起始之间的时间间隔。为了提高可靠性,持续时间极短或极长(即超过中位数的三倍缩放中位数绝对偏差)的上状态和下状态,这些可能由不准确的检测导致,被排除在分析之外。
2.6.4 上状态起始锁定多单元活动平均值的计算
为了计算刺激(ON)和恢复(OFF)期间与检测到的上状态起始对齐的MUA平均值(图3),我们改编自研究人员(2024)描述的方法。简要地说,从连续MUA记录中提取围绕每个检测到的上状态起始的短片段(从上状态起始前150 ms到后500 ms)。对于每个刺激试验(分别针对ON和OFF期),这些片段随后在上状态和对应于第2/3层或第5层的皮层通道之间取平均。所得片段随后在试验之间取平均。仅使用在ON期最后一分钟(每只动物471.67 ± 118.93个上状态)和OFF期(每只动物468.63 ± 111.17个上状态)检测到的上状态来计算MUA平均值。最后,我们计算了在上状态起始后10 ms开始的40 ms窗口内刺激期间和基线期间的平均MUA水平。
2.6.5 局部场电位振幅的比较
我们还研究了NIR刺激是否对皮层慢波的振幅有可测量的影响(图4)。为了提取局部场电位,使用三阶零相移巴特沃斯滤波器将记录的宽带(0.1–7500 Hz)皮层信号在0.5至200 Hz之间进行带通滤波。为了消除电源线噪声,在50 Hz处应用了二阶无限脉冲响应陷波滤波器。为了减少数据大小和计算时间,LFP信号被下采样至2 kHz。非功能性和噪声通道被排除在进一步分析之外(8次记录中总共n = 8个通道)。
为了评估NIR刺激对LFP振幅的影响,我们计算并比较了ON期最后一分钟和OFF期(后者用作基线)期间的平均绝对LFP振幅。振幅还在试验之间和对应于同一层的通道之间取平均。
2.6.6 局部场电位的频谱分析
对提取的LFP信号应用快速傅里叶变换(FFT)以计算0.5 Hz至4 Hz低频带的振幅谱(图5B)。接下来,我们计算了两个独立频带的平均频谱振幅:从0.5 Hz至2 Hz,称为慢波频带,以及从2 Hz至4 Hz,称为高delta频带。FFT振幅谱分别针对ON期最后一分钟和OFF期以及每个通道计算。频谱振幅值在试验之间和对应于同一皮层层的通道之间取平均。为了可视化整个记录期间的频谱变化,使用Chronux MATLAB包计算频谱图(图5A)。
2.6.7 统计分析
使用GraphPad(v10.3.1)或MATLAB进行统计分析。使用Shapiro-Wilk和Kolmogorov-Smirnov检验评估数据的正态性。对于上状态和下状态持续时间以及慢振荡峰值频率,使用Student t检验或配对t检验比较组间差异。使用三因素混合设计重复测量方差分析分析MUA、LFP和频谱振幅,以皮层区域(PtA vs. S1Tr)为被试间因素,以皮层层(第2/3层 vs. 第5层)和NIR刺激(BL vs. ON)为被试内因素。由于所有因素只有两个水平,显著的交互作用后进行简单效应分析(例如,每个皮层层或区域中NIR刺激的效应),无需额外的多重比较检验。使用配对t检验检查简单效应。p值 < 0.05被认为具有统计学显著性。显示数据分布的箱须图(见图2、3、4和5;补充图S1)呈现如下:中间线表示中位数,方框对应第25和第75百分位数,须标记最小值和最大值。单个值用黑点表示。除非另有说明,结果部分中的所有值均以均值 ± 标准差报告。
三、结果
3.1 红外刺激调节麻醉大鼠的自发性皮层慢波活动
我们使用多模态探针(称为光极),其尖端插入氯胺酮/赛拉嗪麻醉大鼠(n = 8)的新皮层颗粒下层,传递近红外光刺激,同时记录皮层局部场电位和多单元活动。光极包含12个等距分布的微电极,允许跨多个皮层层进行记录(图1A)。该器件植入顶叶联合皮层(PtA,n = 4只大鼠)或初级体感皮层的躯干区域(S1Tr,n = 4只)。
在每只动物中,施加连续波NIR刺激4 min(ON期,2只大鼠为2 min),随后是不施加刺激的4 min恢复期(OFF期;图1B)。每个ON-OFF循环在每只动物中重复五次,所有记录以两分钟基线期开始。
NIR刺激在探针尖端1 mm范围内使皮层温度局部升高数摄氏度,升高最为显著。这种刺激诱导的高热导致氯胺酮/赛拉嗪诱导的皮层慢波活动的特性发生显著改变。在记录神经信号的低频(< 200 Hz;LFP)和高频(500–5000 Hz;MUA)成分中均观察到变化(图1C)。例如,与基线相比,刺激期间上状态和下状态的持续时间以及慢波的振幅均被调节。这些效应在刺激期间持续存在,并且完全可逆,一旦NIR刺激停止,参数迅速恢复至基线。此外,局部皮层加温对慢波特性的影响在重复刺激试验中是一致的且可重复的。
为了评估潜在的层特异性效应,我们分别在颗粒上层(即第2/3层)和颗粒下层(即第5层)中分析了刺激诱导的反应(图1C)。此外,我们比较了皮层区域之间(PtA vs. S1Tr)的刺激效应。
3.2 红外刺激对上状态和下状态持续时间的影响
皮层慢波由两个交替阶段组成:上状态,以高突触活动和神经元尖峰为特征;下状态,以近乎完全的神经元静默为标志。在氯胺酮/赛拉嗪麻醉下,两个阶段通常持续数百毫秒。先前的研究表明,这些状态的持续时间对组织温度敏感。因此,我们检查了NIR刺激是否改变上状态和下状态的持续时间。
使用基于皮层群体活动的方法检测上状态和下状态的起始(图2A)。这种方法通常提供状态起始时间的精确估计,并允许准确测量单个状态持续时间。我们发现PtA和S1Tr之间基线上状态和下状态持续时间没有统计学显著差异,尽管PtA中的上状态略长(上状态:PtA,362.28 ± 86.15 ms;S1Tr,292.24 ± 114.16 ms,p = 0.308,Student t检验;下状态:PtA,329.25 ± 69.95 ms;S1Tr,340.85 ± 94.06 ms,p = 0.826,Student t检验)。
刺激和恢复期间检测到的跨状态群体活动的可视化揭示了上状态和下状态持续时间的明显变化(图2B和C)。状态持续时间的分布在刺激期间也明显偏移(图2D和E)。具体而言,NIR刺激显著缩短了上状态持续时间(BL:320.89 ± 94.87 ms;ON:262.40 ± 85.29 ms;p = 0.0012,配对t检验;图2F),而下状态相对于基线显著变长(BL:337.01 ± 76.29 ms;ON:384.71 ± 81.16 ms;p < 0.0001,配对t检验;图2G)。因此,在上状态中花费的时间比例从48.77%降至37.38%,而下状态从51.23%增至62.62%。尽管有这些变化,慢振荡周期的总持续时间(单个上状态和下状态持续时间的总和)在整个记录期间基本保持不变,OFF期最后一分钟和ON期最后一分钟分别为662.31 ms和660.40 ms(图2H)。状态持续时间的变化在刺激和恢复期间逐渐进展(图2H)。

图2. (A) 示意图展示了用于检测上状态和下状态起始的方法。MUA,多单元活动;SPA,平滑群体活动。(B,C) 与检测到的上状态(B)和下状态(C)起始(时间点零)对齐的SPA轨迹短片段的彩色图,按发生顺序排列。彩色图显示单次试验OFF期最后一分钟(基线,上)和ON期最后一分钟(刺激,下)期间提取的SPA轨迹。(D,E) 基线(OFF期最后两分钟;蓝色)和刺激(ON期最后两分钟;红色)期间上状态(D)和下状态(E)持续时间的代表性分布。(F,G) 基线(BL)和刺激期最后一分钟(ON)期间所有大鼠平均上状态(F)和下状态(G)持续时间的分布。每个点代表单只大鼠;线连接重复测量。p < 0.01;p < 0.0001。(H) 刺激试验期间平均上状态(黑色)和下状态(绿色)持续时间的变化。红色和蓝色水平条分别表示刺激(ON)和恢复(OFF)期。阴影区域表示标准误。
为了检查基线和刺激条件之间状态持续时间分布的变化,我们计算了上状态和下状态持续时间的变异系数(CV)。上状态持续时间的CV在刺激期间呈下降趋势,8只动物中有7只显示CV低于基线(BL:0.374 ± 0.073;ON:0.348 ± 0.081;补充图S1A),尽管这一差异未达到统计学显著性(p = 0.080,配对t检验)。类似地,下状态持续时间的CV在刺激期间略有下降(BL:0.305 ± 0.056;ON:0.285 ± 0.052;补充图S1B),条件之间没有显著差异(p = 0.128,配对t检验)。总之,这些结果表明状态持续时间的变异性呈微弱下降趋势,表明红外刺激可能使皮层慢波活动略微更具节律性,如图1C所示。
3.3 红外刺激对群体活动的影响
除了缩短上状态持续时间外,NIR刺激还增加了MUA振幅(图2B)。为了进一步研究这一效应,我们计算了与颗粒上层(第2/3层)和颗粒下层(第5层)中检测到的上状态起始对齐的平均MUA,分别针对刺激和恢复期(图3A和B)。
在大多数动物中,与基线相比,NIR刺激期间上状态期间的MUA振幅更高(图3A和B)。此外,MUA轨迹的斜率在下-上和上-下转换处更陡峭,表明刺激期间状态转换更锐利且更同步。
为了量化刺激效应,我们测量了刺激期最后一分钟内上状态起始后40 ms窗口(10–50 ms)内的平均MUA振幅,并将其与相应的基线期(恢复期最后一分钟)进行比较。
三因素混合设计重复测量方差分析显示,皮层层(F(1,6) = 15.83,p = 0.007,ηp² = 0.725)和NIR刺激(F(1,6) = 22.49,p = 0.003,ηp² = 0.789)对MUA振幅有显著主效应,而皮层区域(PtA vs. S1Tr)的主效应不显著(F(1,6) = 0.09,p = 0.78,ηp² = 0.014)。未观察到显著的双向或三向交互作用。
跨皮层区域和刺激条件,第5层的MUA振幅显著高于第2/3层(第2/3层:2.36 ± 0.97 µV;第5层:6.67 ± 2.92 µV),与先前的发现一致。NIR刺激显著增加了跨两层的MUA振幅(第2/3层:BL,1.99 ± 0.66 µV;ON,2.72 ± 1.08 µV;第5层:BL,5.91 ± 2.50 µV;ON,7.43 ± 3.11 µV;图3C)。总之,这些结果表明NIR刺激增强MUA振幅,独立于皮层区域和层。

图3. (A) 来自一只大鼠基线(BL,蓝色)和红外刺激(ON,红色)期间上状态平均MUA轨迹的代表性示例,第2/3层(左)和第5层(右)。上状态在时间点零开始(灰色虚垂线)。(B) 基线(蓝色)和刺激(红色)期间所有大鼠(n = 8)上状态起始锁定MUA的平均值,第2/3层(左)和第5层(右)。阴影灰色区域表示用于计算图C中MUA振幅值的时间窗口。(C) 基线和刺激期间第2/3层(左)和第5层(右)上状态起始后40 ms时间窗口(10–50 ms;见图B)内计算的平均MUA振幅分布。每个点代表单只大鼠;线连接重复测量。NIR刺激显著增加了跨层的MUA振幅,第5层显示总体MUA高于第2/3层(三因素重复测量方差分析:皮层层F(1,6) = 15.83,p = 0.007,ηp² = 0.73;NIR刺激F(1,6) = 22.49,p = 0.003,ηp² = 0.79;皮层区域F(1,6) = 0.09,p = 0.78,ηp² = 0.014)。**表示NIR刺激的显著主效应。
3.4 红外刺激对局部场电位振幅的影响
LFP信号中慢波振幅的变化通常表明神经同步性的改变,较高的振幅反映底层神经活动的更大网络水平同步性。鉴于NIR刺激期间MUA振幅的增加表明神经同步性增强,我们接下来询问这一效应是否也反映在局部场电位的振幅中。为了评估NIR刺激通过局部皮层加温是否调节自发性活动的时间同步性,我们计算了新皮层颗粒上层(第2/3层)和颗粒下层(第5层)刺激和恢复期间的平均绝对LFP振幅。
三因素混合设计重复测量方差分析显示皮层层有显著主效应(F(1,6) = 12.20,p = 0.013,ηp² = 0.670),表明第5层的LFP振幅高于第2/3层(第2/3层:225.97 ± 60.20 µV;第5层:353.93 ± 96.35 µV)。皮层区域(F(1,6) = 2.53,p = 0.163,ηp² = 0.297)和NIR刺激(F(1,6) = 0.098,p = 0.765,ηp² = 0.016)的主效应不显著。
然而,观察到皮层层 × NIR刺激(F(1,6) = 11.95,p = 0.014,ηp² = 0.666)和皮层区域 × NIR刺激(F(1,6) = 9.34,p = 0.022,ηp² = 0.609)的显著双向交互作用。其他交互作用不显著。
为了跟进层 × 刺激交互作用,使用配对t检验检查了每个皮层层内NIR刺激的简单效应。这些分析显示任一层的NIR刺激效应均不显著(第2/3层:p = 0.500;第5层:p = 0.446),表明尽管存在交互作用,层特异性NIR刺激效应在统计学上不显著。描述性地,NIR刺激略微降低了第2/3层的LFP振幅,略微增加了第5层的振幅(第2/3层:BL,232.31 ± 71.71 µV;ON,219.63 ± 50.31 µV;第5层:BL,342.85 ± 105.47 µV;ON,365.00 ± 92.13 µV;图4B)。
检查皮层区域 × 刺激交互作用显示PtA中NIR刺激的显著简单效应(p = 0.050,配对t检验),刺激期间LFP振幅增加(BL:234.96 ± 82.36 µV;ON:285.98 ± 101.86 µV;图4C)。相比之下,S1Tr中的LFP振幅在刺激期间略有下降,尽管这一效应不显著(p = 0.205,配对t检验;BL:340.20 ± 100.68 µV;ON:298.65 ± 112.38 µV;图4D)。
这些结果表明,NIR刺激增加了PtA中的LFP振幅,但在S1Tr中没有,而层依赖性差异存在但未在单个层内达到显著性。总体而言,平均绝对LFP振幅在第5层高于第2/3层,NIR刺激在PtA中具有区域特异性效应,反映了重复测量方差分析中观察到的显著交互作用。
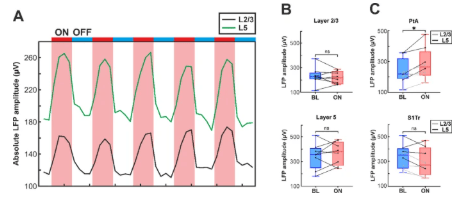
图4. (A) 红外刺激方案期间第2/3层(L2/3,黑色)和第5层(L5,绿色)绝对LFP振幅随时间变化的代表性示例。红色和蓝色水平条分别表示刺激(ON)和恢复(OFF)期。(B) 基线(BL)和NIR刺激(ON)期间所有大鼠第2/3层(上)和第5层(下)平均绝对LFP振幅的分布。单个数据点代表单只动物。任一皮层层内未观察到NIR刺激的显著简单效应。(C) BL和ON期间顶叶联合皮层(PtA,上)和初级体感皮层躯干区域(S1Tr,下)的平均绝对LFP振幅。NIR刺激显著增加了PtA中的LFP振幅(p = 0.050,配对t检验),而在S1Tr中未观察到显著效应。*表示NIR刺激的显著简单效应;ns,不显著。
3.5 红外刺激期间局部场电位的频谱变化
为了进一步检查NIR刺激对皮层局部场电位的影响,我们分析了对应于氯胺酮/赛拉嗪诱导慢波(0.5–2 Hz)和代表更快delta振荡的高delta活动(2–4 Hz)的低频带(0.5–4 Hz)中的频谱变化。NIR刺激伴随局部皮层加温,诱导了低频成分频谱振幅的显著改变(图5A和B)。
与LFP振幅分析的结果类似,一部分动物显示慢波频带的功率强劲增加(图5A,左),而另一些在刺激期间表现出显著下降(图5A,右)。这些刺激诱导的LFP频谱变化在刺激停止后的恢复期迅速逆转(图5A和B)。对于大多数动物,试验间频谱变化的变异性相对较低(例如,见图5A)。
为了量化这些效应,我们使用刺激期(ON)最后一分钟和恢复期(BL;图5C–F)为每只动物计算了上述两个频带(即慢波和高delta频带)的频谱振幅。
对于慢波频带,三因素混合设计重复测量方差分析显示皮层层有显著主效应(F(1,6) = 10.87,p = 0.016,ηp² = 0.644),表明慢波频带中的频谱振幅在第5层高于第2/3层(第2/3层:2163.63 ± 602.92 µV;第5层:3423.67 ± 960.45 µV)。皮层区域(F(1,6) = 2.02,p = 0.205,ηp² = 0.252)和NIR刺激(F(1,6) = 0.002,p = 0.961,ηp² < 0.001)的主效应不显著。
观察到皮层层 × NIR刺激(F(1,6) = 14.16,p = 0.009,ηp² = 0.702)和皮层区域 × NIR刺激(F(1,6) = 8.97,p = 0.024,ηp² = 0.599)的显著双向交互作用,而其他交互作用不显著。
层 × 刺激交互作用显示任一层的NIR刺激简单效应均不显著(第2/3层:p = 0.413;第5层:p = 0.517,配对t检验;图5C)。描述性地,NIR刺激略微降低了第2/3层慢波频带的频谱振幅,略微增加了第5层的频谱振幅(表1)。
检查皮层区域 × 刺激交互作用显示PtA(p = 0.056,配对t检验)或S1Tr(p = 0.187,配对t检验;图5E)中NIR刺激的简单效应均不显著。尽管如此,且与LFP振幅结果一致,慢波频带中的频谱振幅在PtA中显示出在NIR刺激期间增加的趋势,而在S1Tr中观察到轻微下降(表1;图5E)。
对于高delta频带(图5D和F),未观察到皮层区域或NIR刺激的显著主效应,也未检测到显著的双向或三向交互作用(所有p > 0.10)。观察到皮层层主效应的趋势(F(1,6) = 5.84,p = 0.052,ηp² = 0.493),表明高delta频带中的频谱振幅在第5层高于第2/3层,尽管这一差异未达到统计学显著性(第2/3层:1691.70 ± 589.30 µV;第5层:2340.14 ± 847.51 µV)。
有趣的是,在3只S1Tr植入且第5层LFP和频谱振幅在刺激期间下降的大鼠中(图4C和5D),根据计算的MUA深度分布(补充图S2),刺激位点(光极尖端)可能比其他动物浅200–300 µm。在这些大鼠中,基于解剖和电生理学标志,第一个记录位点(最靠近光极尖端)定位于第5层,而在其余动物中,第一个位点采样了第6层上部的神经活动(补充图S2)。总之,这些观察结果表明NIR刺激的效应可能对刺激器件在皮层内的层状位置敏感,暗示刺激的层特异性调节。
最后,为了评估NIR刺激诱导的氯胺酮/赛拉嗪诱导慢振荡频率的变化,我们测量了第5层中的峰值振荡频率。基线期间的平均峰值频率为1.46 ± 0.28 Hz(范围:1.033–1.867 Hz),刺激期间为1.49 ± 0.28 Hz(范围:1.050–1.883 Hz)。基线和刺激期之间的峰值频率没有显著差异(p = 0.149;配对t检验),这与ON和OFF条件下观察到的慢振荡周期持续时间相似(约660 ms;图2H)一致。类似地,PtA和S1Tr之间的慢振荡峰值频率没有差异(p = 0.608;Student t检验)。测量值与我们先前研究中报告的峰值频率密切匹配,该研究包括更大的样本量,并与其他研究组在啮齿动物中报告的频率一致。
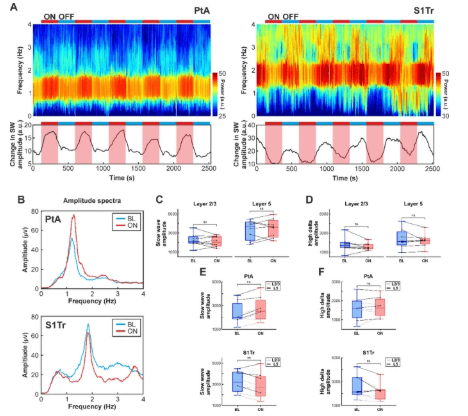
图5. (A) 来自两只大鼠第5层局部场电位的频谱图,显示整个红外刺激方案期间的频谱变化。在一只大鼠中(光极植入PtA,左),低频(0.5–4 Hz)活动的功率在刺激期间增加,而在另一只大鼠中(光极植入S1Tr,右),刺激期间发生频谱功率下降。频谱图下方显示慢波频带(0.5–2 Hz)功率的变化。红色和蓝色水平条分别表示刺激(ON)和恢复(OFF)期。(B) 来自同两只大鼠第5层低频带(0.5–4 Hz)基线(蓝色)和刺激(红色)期间的代表性FFT振幅谱。(C,D) 刺激(ON)与基线(BL)期间所有大鼠第2/3层(左)和第5层(右)慢波(0.5–2 Hz,C)和高delta(2–4 Hz,D)频带平均频谱振幅的分布。任一皮层层内未观察到NIR刺激的显著简单效应。(E,F) 与C-D面板相同,但按皮层区域分组(PtA,上;S1Tr,下)。任一区域任一频带均未观察到NIR刺激的显著简单效应。ns,不显著;PtA,顶叶联合皮层;S1Tr,初级体感皮层的躯干区域。
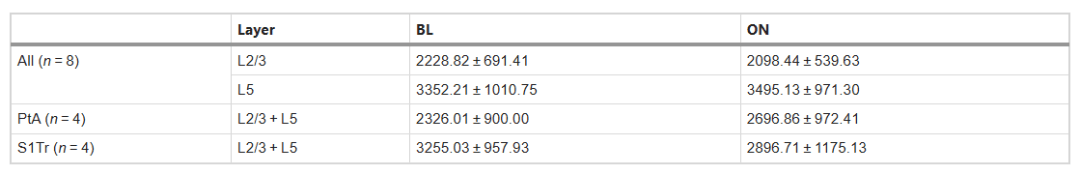
表1 慢波(0.5–2 Hz)频带中的频谱振幅(单位µV)(均值 ± 标准差)。BL,基线期;ON,红外刺激期;PtA,顶叶联合皮层;S1Tr,初级体感皮层的躯干区域;L2/3,第2/3层;L5,第5层。
四、讨论
慢波活动反映了丘脑皮层网络内大型神经元群体的同步行为,并表现出复杂的时空动态。在本研究中,我们使用近红外刺激调节了氯胺酮/赛拉嗪麻醉大鼠中自发发生的皮层慢波活动。我们在刺激期间观察到慢波特性的显著变化,包括其振幅、活跃和静默状态的持续时间以及群体尖峰活动的同步水平。
有趣的是,红外刺激诱导的LFP变化(特别是频谱振幅和慢波振幅)在两个研究的皮层区域之间有所不同。在顶叶联合皮层中,NIR神经调节增强了慢波和delta振荡,表现为频谱振幅增加和慢波振幅增大。相比之下,初级体感皮层显示这些指标下降。几个因素可能导致这种区域间差异。
首先,皮层区域之间的解剖差异可能起作用。例如,联合皮层缺乏明确定义的第4层,与初级感觉区域相比总体皮层厚度减少。因此,尽管光极尖端(即刺激位点)始终定位于皮层表面下方1.2 mm,但其层状位置在皮层区域和动物之间有所不同(见补充图S2)。基于组织学分析,在PtA中,尖端通常位于第6层的上部至中部,而在S1Tr中,在大多数情况下(4只动物中的3只;补充图S2)位于第5层的下部。这些层状差异可能影响了红外刺激诱导的温度变化的空间分布和强度。
其次,颅骨切开术的大小可能影响了光极附近皮层组织的基线温度。在PtA记录中,颅骨切开术(10 × 5 mm²)比S1Tr记录(3 × 3 mm²)大五倍以上。先前的工作表明,由于热损失,颅骨切开术中暴露的皮层组织显著低于生理脑温度。在小鼠中,暴露的皮层表面可比核心体温低达10 °C,显著影响正在进行的皮层活动。因此,较大的颅骨切开术会产生更大的热耗散,可能更多地降低基线皮层温度,并在更大的空间尺度上更高程度地扰动基线神经活动。这一因素可能部分解释了此处观察到的IR刺激的区域特异性效应。
PtA中慢波/delta振幅的增加与先前的发现一致。例如,在体外表达慢节律的雪貂初级视觉皮层冠状脑切片中,较高的腔室温度与低LFP频率的频谱功率增加相关。类似地,研究人员(2015)报告了在生理皮层温度下与冷却组织相比,头部固定、非麻醉小鼠运动皮层中delta频带(0.2–4 Hz)功率升高。有趣的是,与我们在S1Tr中的结果相反,在氯胺酮/赛拉嗪麻醉小鼠中,同一研究发现体感皮层中较高的组织温度与较大的慢波振幅相关。研究人员(2012)还报告了在异氟烷麻醉小鼠桶状皮层中,与在颅骨窗口中较低皮层温度下测量的相比,0–1.5 Hz范围内生理脑温度下的功率增加。
与LFP相关指标的区域变异性相反,其他参数即状态持续时间和MUA振幅在动物间显示一致的变化。具体而言,红外刺激缩短了上状态并延长了下状态,伴随着颗粒上层和颗粒下层MUA振幅的增加和MUA斜率的变陡。
我们关于状态持续时间的发现与上述研究部分一致。在麻醉小鼠的桶状皮层和视觉皮层切片中,较高的皮层温度与较短的上状态相关。然而,我们研究中红外刺激期间观察到的下状态延长仅由研究人员(2012)报告。在脑切片中,下状态的持续时间最初随着温度从32 °C升至36 °C而减少,但随后在38 °C以上开始延长。
在麻醉大鼠中,红外刺激还产生了皮层MUA的更快上升和更高峰值振幅。这些发现与脑切片实验的结果一致,其中较温暖的腔室温度导致状态转换期间更锐利的群体活动,可能反映了更同步的神经元放电和局部神经元群体的更快募集。
我们先前使用类似光极器件的研究表明,红外刺激增强了麻醉大鼠新皮层中低频(1–3 Hz)LFP功率并增加了MUA振幅。本报告中的光极具有微镜尖端,允许将红外光空间聚焦地传递到硅柄的一侧。该研究发现,与器件后侧相比,在光极柄前方300 µm内加热最大的区域,delta功率和MUA振幅显著更高。在这些实验中的一些中,与基线值相比,在受红外刺激影响较小的背面区域观察到频谱和MUA振幅下降。这些发现表明,红外刺激诱导的神经调节的空间范围相对局部化,可能限于光极尖端几百微米范围内。
由于本研究中应用的光极包含相对较少且相对较大的微电极,仅产生少量良好分离的单单元,因此此处未进行单单元分析。尽管如此,最近在大鼠中的研究已在单神经元水平研究了红外刺激的影响,报告了对放电率的兴奋性和抑制性效应。在连续波刺激下(如此处应用),约三分之一的已识别单元表现出降低的放电率(与基线相比平均降低约45%),而约四分之一显示放电增加(放电率平均增加约110%)。尽管存在这种双向调节,但这些变化的总体效应是神经元放电的适度净增加,这可能解释了我们研究中观察到的群体活动(MUA)增强。此外,由于红外刺激缩短了上状态,尖峰被限制在更短的时期内,产生更锐利、更高振幅的MUA峰值和更陡峭的斜率。这一发现进一步支持红外刺激促进更同步的慢波活动的结论。
在本研究中,我们专注于红外刺激对神经回路活动的影响。然而,其他皮层细胞类型,特别是胶质细胞,也可能对观察到的变化有贡献。例如,钙成像结合LFP记录表明,星形胶质细胞在氯胺酮/赛拉嗪麻醉大鼠初级视觉皮层的慢波活动产生中发挥作用。此外,乌拉坦麻醉大鼠体感皮层的钙成像显示,脉冲红外光引发慢速和快速反应,慢成分起源于星形胶质细胞。最近,一项使用大鼠皮层星形胶质细胞培养物中钙成像、药理学、电生理学和遗传操作的综合研究提供了关于脉冲红外光如何调节星形胶质细胞活动的详细见解。总之,这些发现表明星形胶质细胞也可能对我们研究中观察到的NIR刺激相关皮层慢波动态调节有贡献。















