

文章来源:睦科生物公众号
近日,PubPeer平台上针对饶毅团队2025年1月发表于《Communications Biology》的睡眠研究论文《Calcium/calmodulin-dependent protein kinase II α and β differentially regulate mammalian sleep》出现多项数据质疑。9月9日,饶毅教授对PubPeer上的9点评论或质疑做出正式回应。

根据公开信息,PubPeer上的质疑主要涉及以下4类:
- Western blot灰度值小数尾数重复:Figure 1C、1D和Figure 2G的部分灰度值具有相同小数尾数,被质疑数值异常。
- episode数据高度相似:Supplementary Figure S2中,Wake episode number与NREM episode number存在大量高度相似或完全一致的数值。
- 数值呈现固定关系:Figure 2C中6个连续时点保持y=x-10.5的固定关系。
- 水迷宫数据跨表逐项一致:Figure S1A与S1B的Morris水迷宫逃逸潜伏期数据中,6只WT小鼠连续5天的30个数值跨表完全相同。
一、关于Western blot灰度值中部分小数尾数重复的问题(Pubpeer comment#1-3)
评论者注意到Figure 1C、1D 和Figure 2G 的部分Western blot灰度值数值具有相同的小数尾数,并据此认为这些数值“统计上异常”。
这些数值来自图像灰度定量过程,Western blot 定量值受图像灰度、ROI、像素数量、背景扣除以及软件计算和输出精度等因素共同影响。判断这些结果是否可靠,应当回到原始胶图,而不能仅依据数值末位模式进行判断。
回到质疑本身,本文所用的ImageJ灰度值定量方法,的确会产生相同尾数。在视频网站搜索同款定量方法教学视频时,可以看到,视频中按标准流程分析不同膜时,ImageJ 独立导出了多个小数尾数完全一致的灰度值(图1),出现在视频中2:30-3:30之间。
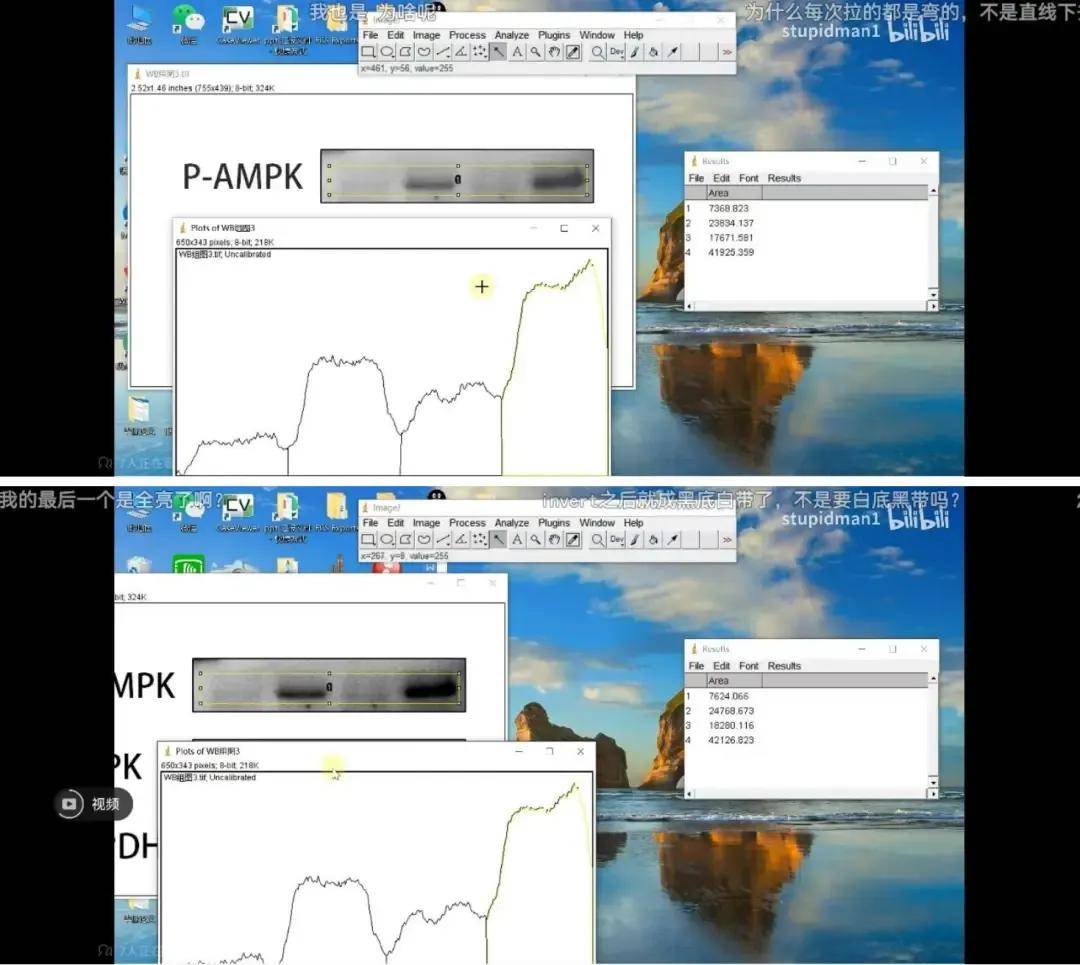
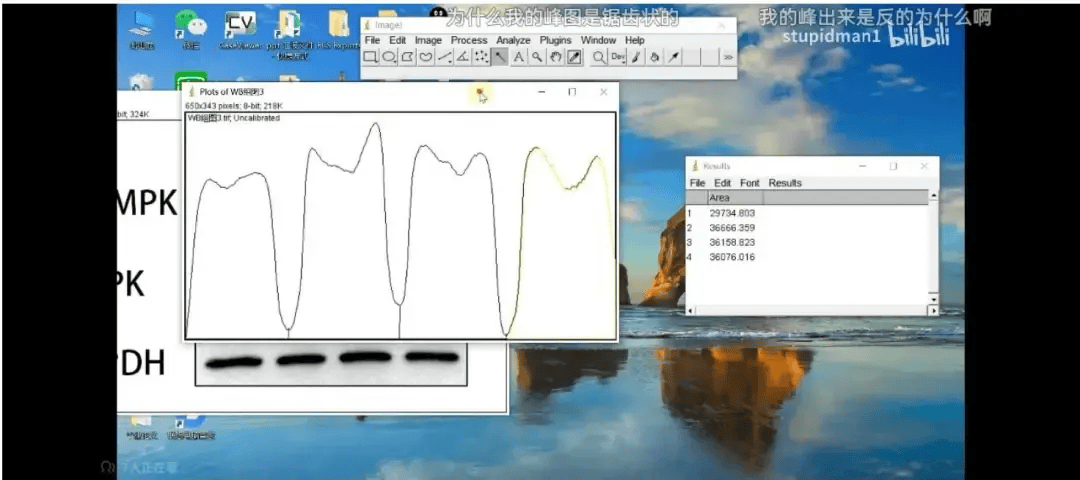
图1在视频网站找到的教学视频中,尾数.823以及.359在不同的条带中反复出现【研途指南:ImageJ测量western blot(WB)条带灰度值】https://www.bilibili.com/video/BV13y4y1h76s/?share_source=copy_web&vd_source=3dd48bd1f3a817a3c77a865b76ce6a17。
我们又随机找了一篇文献3随机选取了一张图用同样方法计算灰度值,也出现了大量的尾数重复现象(图2)。
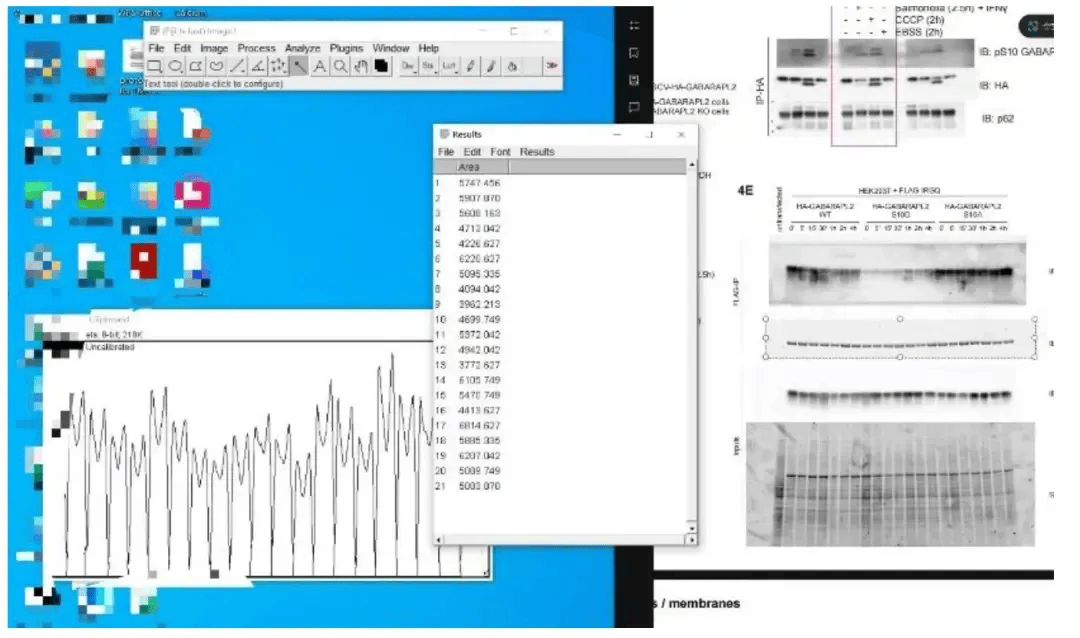
图2 一篇随机文献中的胶图Fig. 4E进行计算,反复出现大量相同尾数.042, .627, .749等。
我们去检索展示了类似数据的期刊,发现一些文章对于灰度值的原始数据仅上传normalized 后用于作图的ratio,而非ImageJ 直接导出的灰度值数据4-7;一些文章是只放了未裁膜的胶,而未展示计算过程8-12。最终我们还是找到了和我们存在类似数据类型的文章13(图3)。
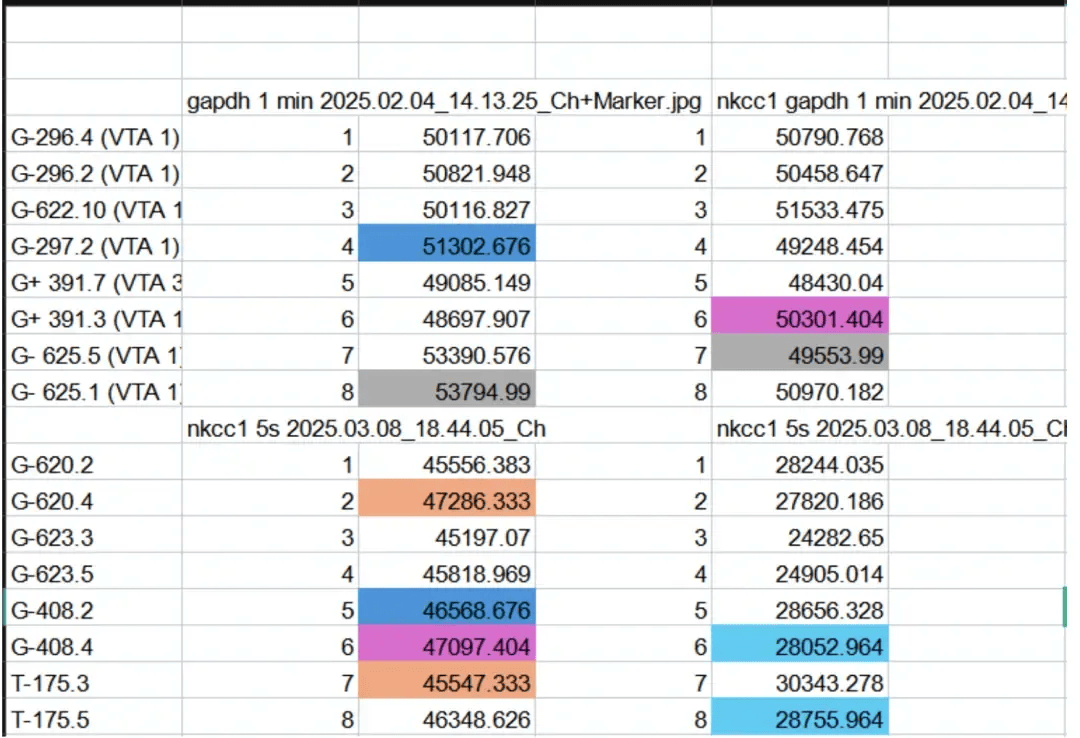
图3 此文章的灰度值尾数也存在高度相似的情况。同颜色标注为同样尾数。
回到本文,我们不仅放了未裁膜的胶,并且把软件直接输出的灰度值也放进了source data,并且没有四舍五入而是选择保留所有有效数字,相信我们所提供的数据量已经满足了学术发表对于WB原始数据的要求。
二、关于Supplementary Figure S2 中Wake episode number 和NREM episode number 高度相似的问题(Pubpeer comment #4-6 & 8)
部分评论将Figure S2A 与S2E,以及Figure S2C 与S2G 中dark phase 的数据进行了逐一比较,并把很多数值“完全相同”或仅相差1–2 次视为异常。这里需要说明的是,Wake episode number 和NREM episode number 并不是两个彼此独立产生的数据集。它们均来自同一只动物、同一段EEG/EMG 睡眠记录的状态序列。在连续的睡眠—觉醒状态序列中,一个Wake episode 的结束通常对应一个NREM episode 的开始,反之亦然。因此,在一定时间窗口内,Wake episode number 和NREM episode number 在数学上本来就高度耦合。
举例而言,在一个简单的
Wake → NREM → REM → Wake → NREM → Wake
状态序列中,Wake episode 和NREM episode 的数量天然只相差0 或1。实际动物睡眠还包含REM 状态,其中低频率发生的REM → NREM转换以及罕见发生的Wake → REM转换会导致差值略有变化,但两者高度接近是睡眠状态转换结构的自然结果,而不是两个“独立实验数据异常相似”。因此,评论中所强调的“相同”“相差1”“相差2”的规律,本身并不能作为数据异常的证据。
同样地,我们找到了一些和我们统计了相同指标的文章,虽然它们有些没有提供原始数据,但从柱状图以及数据点对应的趋势来讲,与我们的结果是相似的。
文章1:Effects of Social Defeat Stress on Sleep in Mice14(图4)
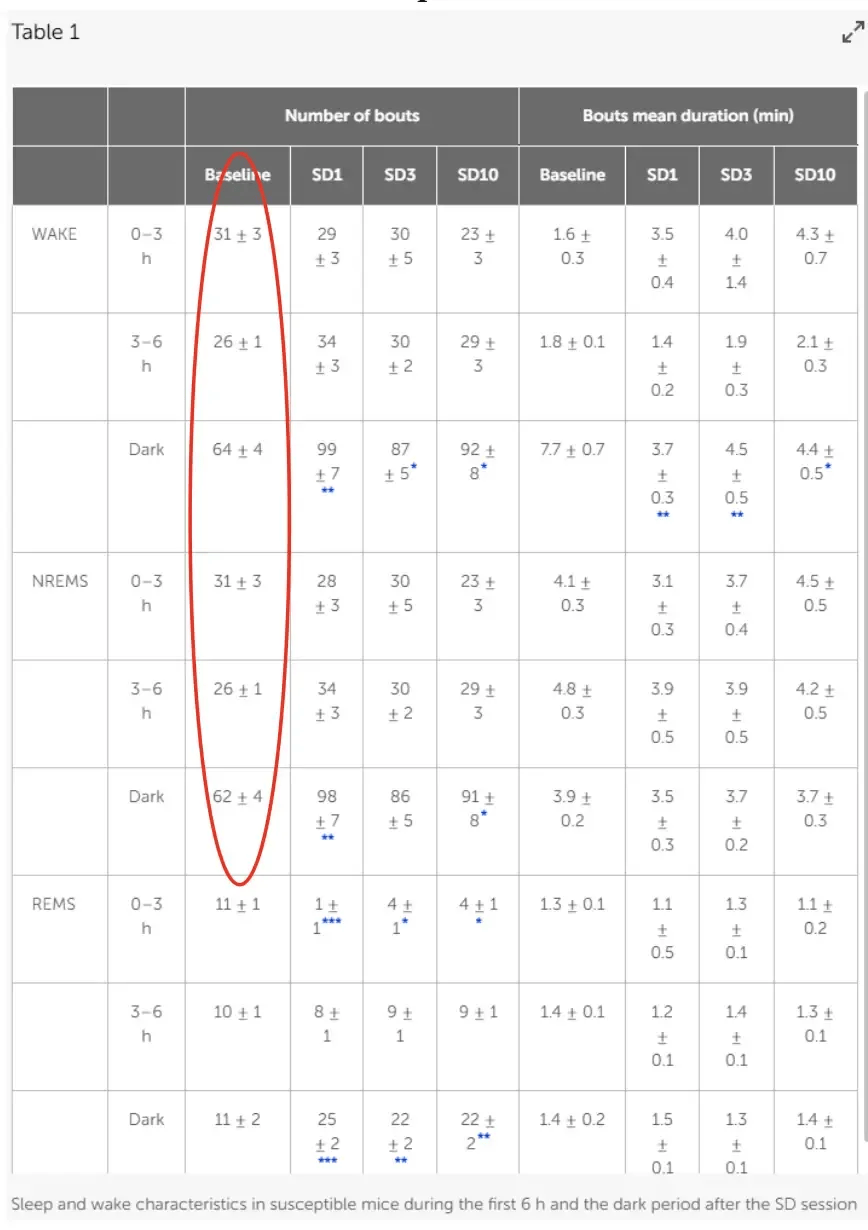
图4 本文Table 1中列出的number of bouts (等同于本文Episode number)在Wake和NREMS baseline完全一致。
文章2:Early-life sleep disruption in Shank3-deficient rats: A preclinical model for autism-related sleep mechanisms and interventions15(图5)
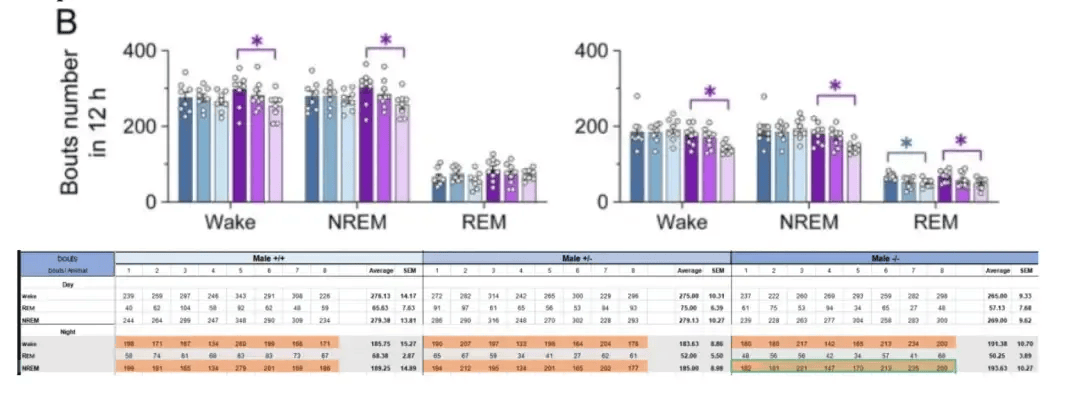
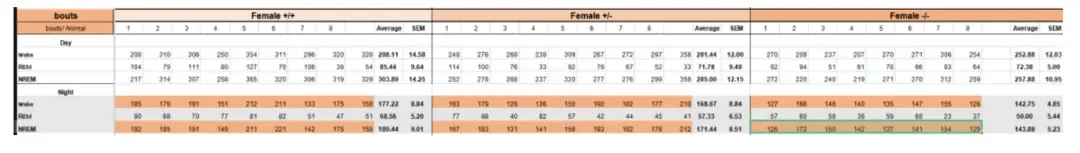
图5本文Figure 4B呈现数据中night的NREM bouts number和wake bouts number数量相近,原始数据多有相差1、相差2以及完全相等的情况(标黄数据部分)。
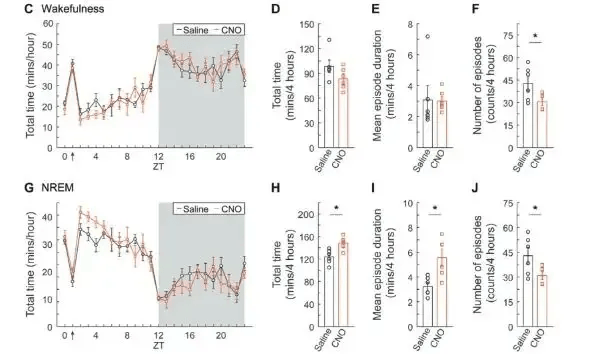
文章3:Chemogenetic activation of astrocytes modulates sleep–wakefulness states in a brain region-dependent manner16(图6)
图6 这篇文章没有给出原始数据,但是看Figure2 F和J图数据点分布的pattern和大致对应的数值是几乎一致的。
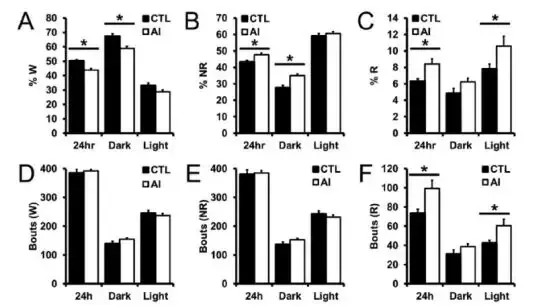
文章4 :Anterior Insula Regulates Multiscale Temporal Organization of Sleep and Wake Activity17(图7)
图7 这篇文章没有给出数据点,但是Figure2 D图和E图的无论是24h、Dark还是light的平均值与误差棒是几乎一致的。
同样地,在文章5: Octacosanol restores stress-affected sleep in mice by alleviating stress18
Figure 3A三组数据,
文章6:The effect of Neuroligin-2 absence on sleep architecture and electroencephalographic activity in mice19Figure 2B三组数据,
文章7:Sparse Activity of Hippocampal Adult-Born Neurons during REM Sleep Is Necessary for Memory Consolidation20Figure 3E四组数据,
文章8:Red light at intensities above 10lx alters sleep–wake behavior in mice21Figure 2 abc三组数据和Figure 4a这些文章中的NREM episode number以及Wake episode number也存在均值与误差棒几乎一致的情况。
三、关于Figure 2C 中两列cumulative REM rebound 数据在连续时间点保持固定差值的问题(Pubpeer comment #7)
有评论指出,Figure 2C 中两只动物在连续多个时间点之间保持了固定的10.5 min 差值。这里同样存在对数据结构的误解。Figure 2C 展示的是cumulative REM rebound,即小鼠在睡眠剥夺后REM相较于剥夺前对应时间点差值的累计值,而不是每一个时间点相互独立的测量值。
在这样的计算方式下,只要两只动物在某一时间段内新增的REM rebound相同,或者这两只动物在睡眠剥夺前后的该时段完全没有REM发生,两条累计曲线此前已经存在的差值就会自然保持不变。特别是,质疑图中标注出的时间段是小鼠活动的高峰期,即使是正常小鼠该时间段REM睡眠也有为0的情况。再加上,Camk2a敲除鼠本身就有REM睡眠缺陷,被质疑的“连续六个时间点都差10.5分钟”的两只敲除小鼠,有四个时间点在剥夺前后没有REM睡眠,有两个时间点差值恰好一样(图8)。这在文章中检测的25只小鼠中并非是一个小概率事件。
图8 标绿的数据即是被质疑的数据点。

四、关于Supplementary Figure S1A 和S1B 中WT 数据完全相同的问题(Pubpeer comment #9)
Figure S1A和S1B 使用的是同一批WT C57BL/6J 小鼠(n=6)。WT、Camk2a+/−、Camk2a−/−、Camk2b+/−和Camk2b−/−小鼠在同一实验周期内完成Morris water maze 测试。作图时,为了分别展示Camk2a 和Camk2b mutant 的结果,我们将同一套实验数据分为两个panel,并将这批WT 小鼠作为共同对照。因此,S1A 和S1B 中WT 的individual escape latency data 应完全相同。
回顾这一实验设计,针对两个独立knockout line 分别使用各自的littermate WT controls 会是更加严格的设计,可以更充分地控制遗传背景和繁育环境等潜在差异。但是,这一设计局限与本评论所称的“duplicate data”是两个不同问题:两个panel 中WT 数据相同,是因为它们在设计时使用了同一批WT,而不是将一组独立实验的数据复制到了另一组实验中。
参考文献
- Tatsuki, F. et al. Involvement of Ca(2+)-Dependent Hyperpolarization in Sleep Duration in Mammals. Neuron 90, 70-85 (2016).
- Tone, D. et al. Distinct phosphorylation states of mammalian CaMKIIβ control the induction and maintenance of sleep. PLoS Biol 20, e3001813 (2022).
- Zhang, J.et al.Epithelial SLC39A1 prevents acute lung injury through zinc-mediated transcriptional activation of autophagy in male mice. Nat Commun 17 (2026).
- Zhao, Q. et al. Non-catalytic mechanisms of KMT5C regulating hepatic gluconeogenesis. Nat Commun 16, 1483 (2025).
- Angelino, E. et al. Impaired cAMP-PKA-CREB1 signalling drives mitochondrial dysfunction in skeletal muscle during cancer cachexia. Nat Metab 7, 2548-2570 (2025).
- Akula, M. K. et al. Protein prenylation restrains innate immunity by inhibiting Rac1 effector interactions. Nat Commun 10, 3975 (2019).
- Nassal, M. M., Wan, X., Laurita, K. R. & Cutler, M. J. Atrial SERCA2a Overexpression Has No Affect on Cardiac Alternans but Promotes Arrhythmogenic SR Ca2+ Triggers. PLoS One 10, e0137359 (2015).
- Blake, M. R. et al. Chondroitin sulfate proteoglycan 4,6 sulfation regulates sympathetic nerve regeneration after myocardial infarction. Elife 11 (2022).
- Landon, A. L. et al. MNKs act as a regulatory switch for eIF4E1 and eIF4E3 driven mRNA translation in DLBCL. Nat Commun 5, 5413 (2014).
- Ge, G. et al. GLI1 facilitates collagen-induced arthritis in mice by collaborative regulation of DNA methyltransferases. Elife 12(2023).
- Pradhan, S. et al. Scrutinized lipid utilization disrupts Amphotericin-B responsiveness in clinical isolates of Leishmania donovani. Elife 14 (2025).
- Giamundo, G. et al. Ezrin defines TSC complex activation at endosomal compartments through EGFR-AKT signaling. Elife 13 (2025).
- Woo, J. et al. Dynamic changes in chloride homeostasis coordinate midbrain inhibitory network activity during reward learning. Nat Commun 16, 10903 (2025).
- Henderson, F., Vialou, V., El Mestikawy, S. & Fabre, V. Effects of Social Defeat Stress on Sleep in Mice. Front Behav Neurosci 11, 227 (2017).
- Qiu, M. H. et al. Early-life sleep disruption in Shank3-deficient rats: A preclinical model for autism-related sleep mechanisms and interventions. Transl Psychiatry 16 (2026).
- Kurogi, Y., Sanagi, T., Ono, D. & Tsunematsu, T. Chemogenetic activation of astrocytes modulates sleep-wakefulness states in a brain region-dependent manner. Sleep Adv 5, zpae091 (2024).
- Chen, M. C. et al. Anterior Insula Regulates Multiscale Temporal Organization of Sleep and Wake Activity. J Biol Rhythms 31, 182-193 (2016).
- Kaushik, M. K., Aritake, K., Takeuchi, A., Yanagisawa, M. & Urade, Y. Octacosanol restores stress-affected sleep in mice by alleviating stress. Sci Rep 7, 8892 (2017).
- Seok, B. S. et al. The effect of Neuroligin-2 absence on sleep architecture and electroencephalographic activity in mice. Mol Brain 11, 52 (2018).
- Kumar, D. et al. Sparse Activity of Hippocampal Adult-Born Neurons during REM Sleep Is Necessary for Memory Consolidation. Neuron 107, 552-565.e510 (2020).
- Zhang, Z., Wang, H. J., Wang, D. R., Qu, W. M. & Huang, Z. L. Red light at intensities above 10 lx alters sleep-wake behavior in mice. Light Sci Appl 6, e16231 (2017).














