

秀丽隐杆线虫是生命科学领域经典的模式生物,主要以雌雄同体形式存在,个体既能产生精子又能产生卵子,可通过自交完成繁殖,以自交的方式进行繁殖,单个亲本即可将全套遗传信息传递给子代,保证遗传背景稳定,因此该物种是研究基因功能、发育机制的重要模式生物。在线虫遗传研究中,大量关键基因为必需基因,这类基因发生突变后会引发致死、不育等缺陷,无法稳定留存。而平衡子的出现,有效解决了致死突变的保种与研究难题,成为线虫遗传学不可或缺的核心工具。本文将系统介绍平衡子的核心概念、应用价值与使用方法,并附上常用平衡子图谱,同时介绍基于CRISPR系统构建的新型平衡子,以供读者查阅。
1、核心概念
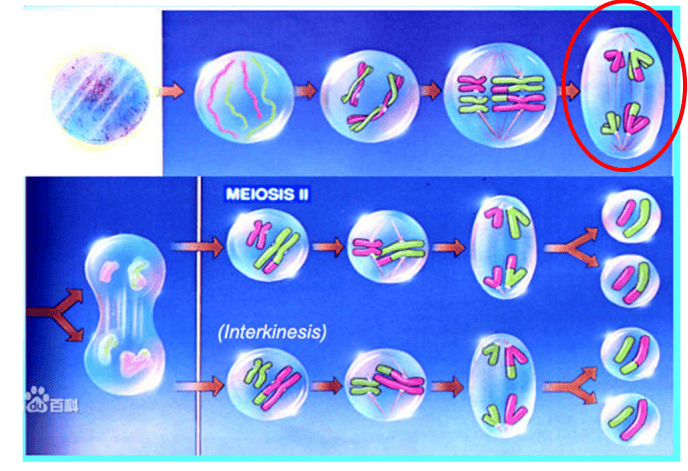
平衡子是一类能够抑制同源重组的染色体重复、倒位、易位等重排结构,是线虫遗传学的重要工具;它带有显性标记性状,可直观判断该染色体是否存在,进一步可以用来追踪同源的另一条染色体的存在与否,例如下文将详细介绍的 hT2平衡子,常带有整合的绿色荧光蛋白,可以标示平衡子的存在。在减数第一次分裂前期(减Ⅰ前期)同源染色体联会时,四分体中同源染色体的非姐妹染色单体之间发生交叉互换,平衡子的作用就是抑制交叉互换的发生,见图1。
添加图片注释,不超过 140 字(可选)
图1
平衡子的核心功能是稳定维持携带致死、不育突变的杂合子状态。科研定义中,平衡子特指可抑制染色体同源重组的染色体重复、倒位、易位等重排结构,致死、不育突变可进一步细分,按表型分为胚胎致死、幼虫致死、成体不育,以及温度敏感型条件致死等多种类型。据遗传学统计,线虫的必需基因多达7000个,对应的海量致死突变,是解析生物基础生命过程的关键素材,也让平衡子的研究与应用极具科研价值。
2、应用举例
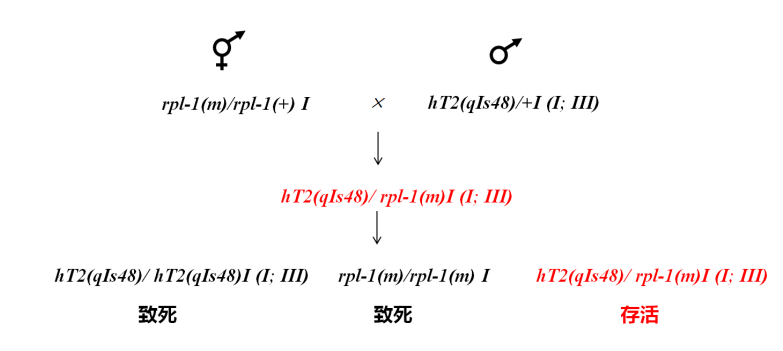
线虫I染色体的rpl-1基因,其表达的蛋白是核糖体大亚基的组成部分,该基因是RNA结合与翻译过程的必需基因,rpl-1发生敲除或突变后,突变体只能以杂合子rpl-1(m)/rpl-1(+) I的形式存活,纯合子rpl-1(m)/rpl-1(m) I无法存活,该杂合子自交后,纯合突变体rpl-1(m)/rpl-1(m) I胚胎致死,存活子代仅为杂合子与野生型个体,因此rpl-1(m)突变无法稳定保种传代。平衡子hT2,它以杂合子的形式存在,基因型缩写为hT2(qIs48)/+ I (I; III),其纯合子hT2(qIs48)/hT2(qIs48) I (I; III) 具有致死效应,无法存活,存活的子代均为hT2(qIs48)/+ I (I; III)杂合个体,可稳定传代,qIs48带有绿色荧光标记,可以很容易找到杂合的线虫。因此利用hT2平衡子可稳定传代的特点,将两种线虫杂交,可获得基因型为hT2(qIs48)/rpl-1(m) I (I; III) 的个体,这样每一个子代都携带rpl-1(m)突变,从而获得可稳定遗传的虫株,见图2。
添加图片注释,不超过 140 字(可选)
图2
3、平衡子分类
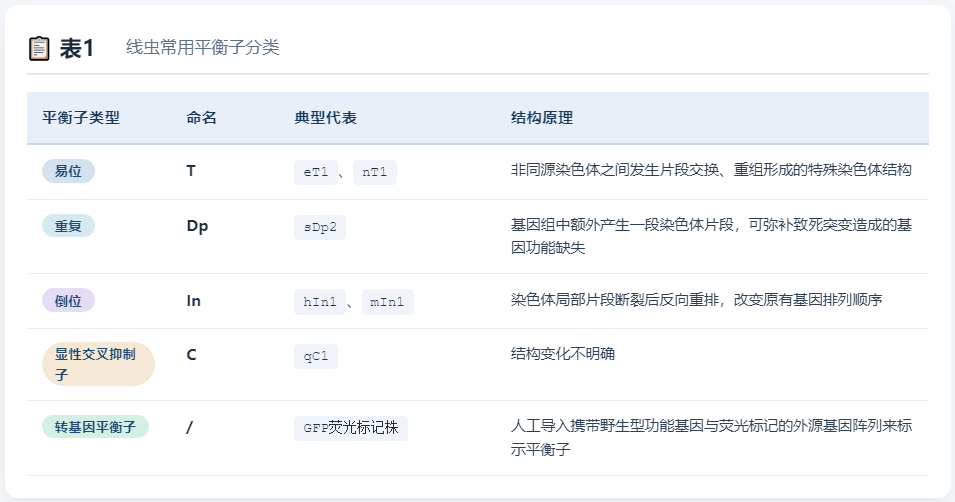
目前线虫研究中主流的平衡子主要分类:易位Translocations(T)、重复Duplication(Dp)、倒位Inversion(In)、显性交叉抑制子Dominant crossover suppressor(C),转基因平衡子等,见表1。转基因平衡子是人工构建平衡子的一类技术手段,常通过人工导入携带野生型功能基因与荧光标记的外源基因阵列来标示平衡子,提升平衡个体的筛选效率。最常用方法就是给平衡子添加荧光标记或缺陷表型。
添加图片注释,不超过 140 字(可选)
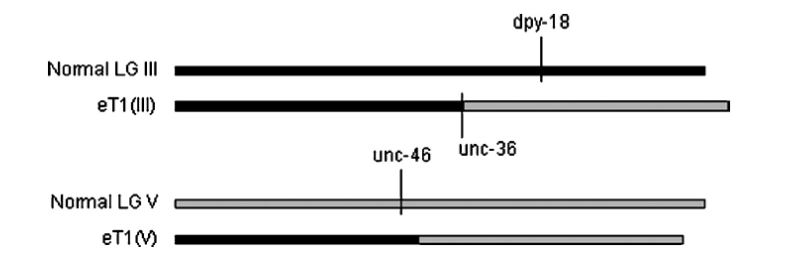
易位型平衡子以eT1为例, III染色体上unc-36至左端(生物学方位,见图3灰色部分)与V染色体左端区间(图3黑色部分)发生相互易位。eT1可以平衡 III染色体unc-36至左端的区段,以及V染色体上unc-23至unc-42区间。
添加图片注释,不超过 140 字(可选)
图3
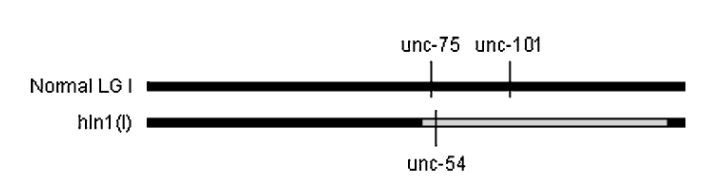
倒位型平衡子以hIn1为例,hIn1为I染色体上unc-75至unc-54区间的染色体倒位,使得该平衡子可以在这个区间发挥平衡作用,见图4。
添加图片注释,不超过 140 字(可选)
图4
4、平衡子图谱
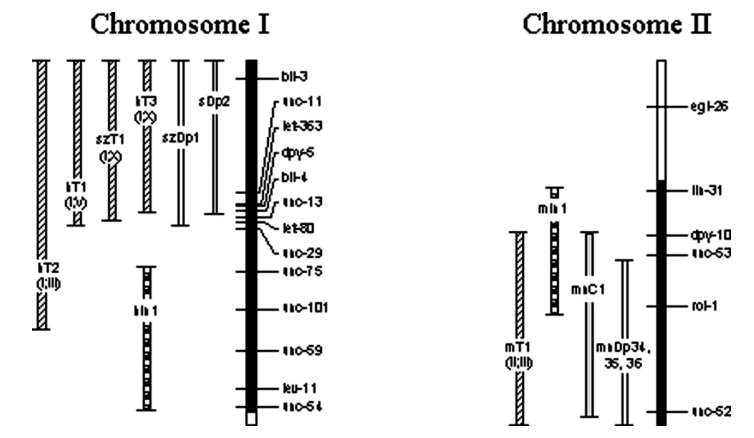
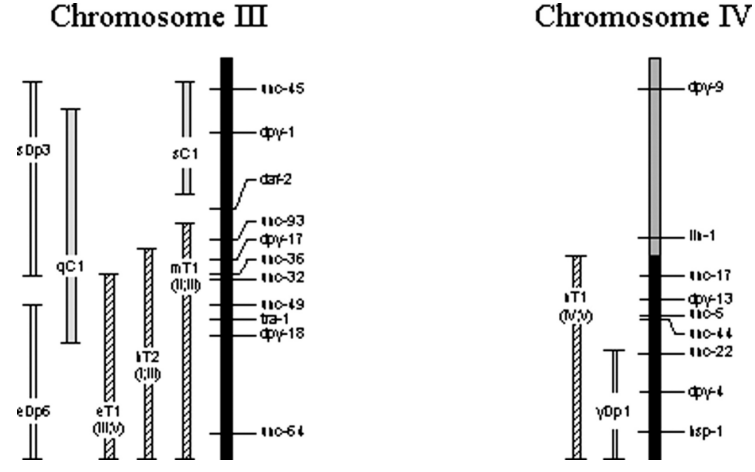
经科研人员长期研究,已构建起庞大的线虫平衡子体系,并将部分常用平衡子整理为平衡图谱,本文也将六个染色体对应的常用平衡子进行整理,方便读者查阅(见图5至图7)。如图5,hT2可以平衡I染色体的bli-3到unc-101区间。
添加图片注释,不超过 140 字(可选)
图5
添加图片注释,不超过 140 字(可选)
图7
因此可根据致死/不育突变基因所在的染色体位置,结合平衡子图谱选择对应的平衡子品系;此外,也可通过秀丽隐杆线虫专业数据库WormBase查询并筛选合适的平衡子。总而言之,平衡子突破了传统线虫遗传研究的技术瓶颈,解决了致死突变难以稳定保存、筛选效率低的核心问题。多样化的平衡子体系,覆盖了线虫绝大部分基因组区域,为解析基因功能、探究生命调控机制提供了稳定、高效的技术支撑,是线虫遗传学研究不可或缺的基础工具。
5、CRISPR系统构建的新型平衡子
传统平衡子依赖辐射诱变与相互易位,存在明显缺陷:易位导致假连锁,且易位杂合子自交后代约10/16为非整倍体胚胎,阻碍表型分析;大片段单倒位容易发生自发断裂,导致平衡功能失效;随机整合转基因的重组抑制边界不明确。近年来,CRISPR/Cas9编辑技术为平衡子的工程化构建提供了全新路径,突破了传统随机诱变的不可控性,系列研究在线虫上建立起结构明确、无非整倍体、覆盖更广的新型平衡子体系。
Iwata等[5]首次利用CRISPR/Cas9在生殖系中诱导位点特异性染色体重排。该方法以双sgRNA在目标外显子处产生DSB,配合同源模板引导倒位,并于NHEJ缺陷的lig-4 (tm750)突变背景中编辑以提升同源重组比例。研究构建X染色体交叉抑制子tmC1、tmC2等,总长17 cM(约6.7 Mb),比既往模式生物生殖系倒位长近两个数量级,全基因组测序证实无非靶重排,可稳定维持致死突变20代以上;交叉抑制子双倒位比简单倒位更有效抑制重组。Dejima等[6]进一步报道了该无非整倍体且结构明确的平衡染色体工具包,生成13个交叉抑制子,每个由两次重叠倒位构成,断点经Sanger及全基因组测序确认;该工具包与经典抑制子合计覆盖18074/20320编码基因(约89%),叠加配对中心区域的荧光标记平衡子后,基因组覆盖度可达91%以上,显著提升胚胎及幼虫早期致死表型分析可靠性,并支持CRISPR高效分离致死等位基因。针对配对中心(PC)区域长期缺乏平衡子覆盖的研究空白,Chen等[7]开发CRISPR/Cas9与Cre/LoxP联用策略:先通过改进的cs-CRISPR技术插入含LoxP位点的DNA片段,对L2期线虫34℃热激4小时诱导Cre重组酶实现倒位,构建ustIn1(LG II)、ustIn2(LG IV)、ustIn3(LG X)等覆盖PC区的倒位株系,使全基因组的平衡子覆盖度达99%以上。
参考文献:
- [1] Edgley, M. L., Baillie, D. L., Riddle, D. L., & Rose, A. M. (2006, April 6). Genetic balancers. In D. Fay (Ed.), WormMethods. WormBook. https://doi.org/10.1895/wormbook.1.89.1
- [2] Johnsen, R.C., and Baillie, D.L. (1991). Genetic analysis of a major segment [LGV(left)] of the genome of Caenorhabditis elegans. Genetics 129, 735–752.
- [3] Rosenbluth, R.E., and Baillie, D.L. (1981). The genetic analysis of a reciprocal translocation, eT1(III;V), in Caenorhabditis elegans. Genetics 99, 415–428.
- [4] Lee, J., Jongeward, G.D., and Sternberg, P.W. (1994). unc-101, a gene required for many aspects of Caenorhabditis elegans development and behavior, encodes a clathrin-associated protein. Genes Dev. 8, 60–73.
- [5] Iwata S, Yoshina S, Suehiro Y, et al. Engineering new balancer chromosomes in C. elegans via CRISPR/Cas9[J]. Scientific Reports, 2016, 6: 33840. DOI:10.1038/srep33840.
- [6] Dejima K, Hori S, Iwata S, et al. An Aneuploidy-Free and Structurally Defined Balancer Chromosome Toolkit for Caenorhabditis elegans[J]. Cell Reports, 2018, 22: 232-241. DOI:10.1016/j.celrep.2017.12.024.













