

T-22 ([Tyr5,12,Lys7]-Polyphemusin II) 是一种新型抗 HIV 合成肽,EC50 为 0.008 μg/mL,CC50 为 54 μg/mL。T22 在番茄株高、光合作用、总叶绿素含量和植株气体交换方面均有促进作用,可抗 CMV。
基本信息
- 英文全称:[Tyr⁵,¹²,Lys⁷]-Polyphemusin II
- 通用简称:T-22 / T22 peptide
- 中文名称:鲎肽T22;[5,12 - 酪氨酸,7 - 赖氨酸]- 海蛛毒素 II
- CAS 号:147658-54-6
- 分子式:C₁₀₉H₁₆₄N₃₈O₂₂S₄
- 精确分子量:2486.97
- 氨基酸三字母序列:Arg-Arg-Trp-Cys-Tyr-Arg-Lys-Cys-Tyr-Lys-Gly-Tyr-Cys-Tyr-Arg-Lys-Cys-Arg-NH₂
- 氨基酸单字母序列:RRWCYRKCYKGYCYRKCR-NH₂
- 共价修饰信息:C 端酰胺化;分子内含两对链内二硫键,配对方式 Cys⁴↔Cys¹⁷、Cys⁸↔Cys¹³;无 N 端乙酰化修饰
- 理论等电点 pI:12.61;生理 pH 7.4 条件下净电荷约 + 10,属于强阳离子多肽;紫外特征吸收峰 280 nm(Trp、Tyr 芳香残基)。
结构信息
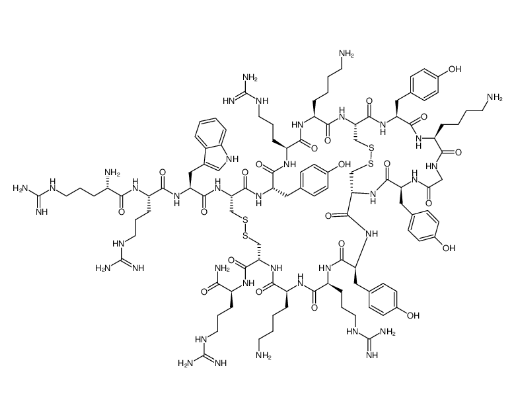
T-22 为人工定点突变改造得到的 18 残基阳离子多肽,母本源自美洲鲎(Limulus polyphemus)血细胞天然抗菌多肽 Polyphemusin II。两处二硫键强制约束多肽骨架折叠形成稳定的反平行 β- 发夹(β-hairpin)二级构象,Gly¹¹ 位于 β 转角区域,维系发夹弯折结构。分子呈现典型两亲性特征:精氨酸、赖氨酸集中分布于一侧形成连续阳离子亲水表面,色氨酸、酪氨酸芳香残基富集构成疏水界面。该两亲性结构既是与细菌膜脂质相互作用的基础,也是特异性识别趋化因子受体 CXCR4 胞外环结构域的关键骨架。构效关系研究证实,完整双二硫键体系不可缺失,还原断裂二硫键后,β 发夹构象解体,CXCR4 拮抗活性与抗菌活性同步大幅丧失;N 端、C 端多个精氨酸残基是维持靶标结合亲和力的核心位点;Tyr⁵、Lys⁷、Tyr¹² 三处定点替换,相较于天然 Polyphemusin II,显著提升多肽对 CXCR4 的选择性结合能力,同时适度优化溶血副作用。
作用机理
T-22 具备两套相互独立的生物功能通路,分别为靶向 CXCR4 受体的信号拮抗作用与非选择性膜扰动抗菌作用。
- CXCR4 受体拮抗通路(核心特征活性)
CXCR4 属于 G 蛋白偶联趋化因子受体,天然配体为 SDF-1α(CXCL12)。T-22 依靠阳离子表面结合 CXCR4 胞外 N 端与胞外环状结构域,竞争性阻断 SDF-1α 与受体结合,抑制下游 G 蛋白信号传导、钙信号内流、细胞骨架重排。该效应产生多重生物学结果:第一,阻断 X4 嗜性 HIV 毒株利用 CXCR4 作为共受体,抑制病毒包膜 gp120 介导的病毒 - 宿主细胞膜融合,阻止病毒侵入 CD4 阳性 T 淋巴细胞;第二,抑制 CXCR4 高表达肿瘤细胞受 SDF-1α 诱导的趋化、侵袭与远处器官归巢,削弱肿瘤转移潜能;第三,抑制免疫细胞定向迁移,调控炎症微环境。T-22 不直接杀伤细胞,依靠受体竞争性结合发挥功能,作用模式区别于小分子 CXCR4 抑制剂。
- 阳离子抗菌膜扰动通路
依靠静电引力靶向结合革兰氏阴性菌、阳性菌细胞膜表面带负电的脂多糖、磷脂酰甘油、心磷脂;疏水芳香区域插入脂质双分子层,诱导膜结构无序化、跨膜孔隙形成,细胞膜通透性失控,胞内钾离子、ATP、核酸等内容物外泄,最终诱导菌体死亡。同时可以抑制致病菌生物膜成熟。该作用缺乏严格物种选择性,高浓度条件下会扰动哺乳动物细胞膜,诱发溶血与细胞毒性,构成治疗窗口限制。
- 靶向递送衍生功能
T-22 与纳米载体、蛋白、化疗药物偶联后,可介导复合物通过 CXCR4 依赖的胞吞途径进入靶细胞,广泛用作 CXCR4 阳性肿瘤细胞靶向配体。
研究进展
T-22 于 1992 年由藤井信(N. Fujii)团队首次合成报道,最初筛选目标为新型抗 HIV 多肽抑制剂。早期体外实验证实其对 X4 嗜性 HIV-1 具备强效抑制活性,EC₅₀可达纳克级别,与 AZT 作用机制互不重叠;随后分子生物学验证其靶点为趋化因子受体 CXCR4,奠定多肽类 CXCR4 拮抗剂研究方向。后续大量构效改造工作围绕降低溶血毒性、缩短肽链长度展开,衍生出 TW70、T140 等优化衍生物。
随着肿瘤转移机制研究推进,学界研究重心逐步从抗病毒转向肿瘤转移抑制。体外细胞实验与荷瘤动物模型证明,T-22 能够有效抑制乳腺癌、肺癌、胶质母细胞瘤、肝癌、急性髓系白血病等 CXCR4 高表达肿瘤的侵袭与远处转移;同时可阻断肿瘤干细胞向骨髓、淋巴结归巢。近年新兴方向集中于靶向递送体系构建:将 T-22 修饰脂质体、聚合物胶束、蛋白纳米颗粒、介孔硅载体,实现化疗药物、荧光显像探针、光治疗试剂向肿瘤组织选择性富集,实现靶向化疗、活体肿瘤荧光成像一体化。
抗菌方向研究起步相对更晚,现有数据证实 T-22 对多重耐药金黄色葡萄球菌、铜绿假单胞菌、大肠杆菌具备抑制活性,兼具抑菌与抗生物膜效果,为肿瘤合并局部感染提供潜在联用策略。
现阶段转化存在明确瓶颈:多肽口服极易被消化道蛋白酶降解,生物利用度极低,仅适合静脉、局部给药;体内循环半衰期短,易被血清蛋白酶水解;高剂量下依旧存在红细胞溶血风险,限制长期全身给药。当前改造策略包含:氨基酸 D 型化修饰、环化优化、聚乙二醇修饰、构建多肽组装体提升血清稳定性;同时探索局部瘤内给药、吸入给药等给药方式缩小全身暴露风险。对比小分子 CXCR4 拮抗剂 AMD3100,T-22 受体选择性更高,脱靶效应更低,但合成成本更高、给药方式受限。
溶解与保存
溶解方案:优先选用无菌超纯水、10–50 mM 醋酸铵水溶液、pH 5.5–7.2 无菌 PBS 缓冲液溶解;避免使用强碱性溶液,碱性环境加速半胱氨酸氧化,引发二硫键错配、分子聚合。多肽水溶性良好,但冻干粉末吸湿性强,称量操作尽量快速,减少暴露于空气。不建议直接使用高浓度碳酸氢钠溶液;若需要配制高浓度储备液,可温和水浴 30–37 ℃辅助溶解,禁止长时间高温加热。
短期保存:配制完成的多肽水溶液 4 ℃避光可稳定保存 1–3 天;溶液禁止室温长期放置,光照、溶解氧会催化 Trp、Cys 氧化降解。
长期保存:冻干粉末密封、避光、-20 ℃条件储存,稳定性可达数年;配制后的工作液分装为小体积冻存于 - 80 ℃,严格规避反复冻融,反复冻融会破坏二硫键结构并引发多肽聚集。储存体系尽量减少金属离子污染,金属离子加速氧化降解。
相关多肽
- Parathyroid Hormone (39-84) (human)
- Parathyroid Hormone (44-68) (human)
- Parathyroid Hormone (64-84) (human)
- Parathyroid Hormone (69-84) (human)
- Parathyroid Hormone (70-84) (human)
- PDGF A-Chain (194-211)
- Peptide 810
- Peptide B (bovine)
- Peptide E (BAM-3200)
- Peptide G13(Glycoprotein IIb Fragment (300-312))
- Peptide M
- Peptide T
- Peptide VQY (porcine) (Valosin (porcine))
- Peptide WE-14
- Peptide YY (human)
- Perisulfakinin
- Pheromonotropin (Pseudaletia separata) (PssPT)
- Phospho-DSIP
- Phospholipase A2 Activating Peptide
- Phosphorylase Kinase β-Subunit Fragment (420-436)
- Phyllolitorin (Phyllomedusa sauvegei)
- Phyllomedusin
- Physalaemin
- Physalaemin-Like Peptides
- Pituitary Adenylate Cyclase Activating Polypeptide (1-38) (frog) (PACAP-38 (frog))
- Platelet Factor 4 (58-70) (human)
- Pneumadin (human)
- Pneumadin (rat)
- Polistes Mastoparan
- Polyphemusin II-Derived Peptide [Tyr5,12, Lys7]-Polyphemusin II (T22)
- pp60 c-src (521-533)
- pp60 c-src (521-533) (phosphorylated)
所有产品仅用作实验室科学研究,不为任何个人用途提供产品和服务













